APRUEBA PLAN DE RECUPERACIÓN, CONSERVACIÓN Y GESTIÓN DEL ZORRO CHILOTE O DE DARWIN (LYCALOPEX FULVIPES)
Núm. 41.- Santiago, 19 de noviembre de 2024.
Vistos:
Lo dispuesto en los artículos 19 N° 8 y 32 N° 6, de la Constitución Política de la República, cuyo texto refundido, coordinado y sistematizado fue fijado por el decreto N° 100, de 2005, del Ministerio Secretaría General de la Presidencia; en los artículos 37, 70 letra i), 71 letra f) y 73 de la ley N° 19.300, sobre Bases Generales del Medio Ambiente; en la ley N° 21.600, que crea el Servicio de Biodiversidad y Áreas Protegidas y el Sistema Nacional de Áreas Protegidas; en el Convenio sobre Diversidad Biológica, promulgado como ley de la República mediante el decreto supremo N° 1.963, de 1994, del Ministerio de Relaciones Exteriores; en el decreto con fuerza de ley N° 1/19.653, de 2000, del Ministerio Secretaría General de la Presidencia, que fijó el texto refundido, coordinado y sistematizado de la Ley N° 18.575, Orgánica Constitucional de Bases Generales de la Administración del Estado; en la ley N° 19.880, que Establece Bases de los Procedimientos Administrativos que Rigen los Actos de los Órganos de la Administración del Estado; en el decreto supremo N° 1, de 2014, del Ministerio del Medio Ambiente, que aprueba el Reglamento para la elaboración de Planes de Recuperación, Conservación y Gestión de Especies; en el decreto supremo N° 151, de 2006, del Ministerio Secretaría General de la Presidencia, que oficializa primera clasificación de especies silvestres según estado de conservación; en la carta de 2 de marzo de 2022, del Centro de Conservación de la Biodiversidad Chiloé Silvestre; en la resolución exenta N° 719, de 30 de junio del 2022, del Ministerio del Medio Ambiente, que inicia el procedimiento abreviado para la elaboración del Plan de Recuperación, Conservación y Gestión del zorro chilote o de Darwin (Lycalopex fulvipes); en el acuerdo N° 14/2024, del Consejo de Ministros para la Sustentabilidad y el Cambio Climático, adoptado el 5 de julio de 2024; en la resolución N° 7, de 2019, de la Contraloría General de la República; y,
Considerando:
1. Que, conforme al artículo 19 N° 8 de la Constitución Política de la República, es deber del Estado tutelar la preservación de la naturaleza.
2. Que, conforme lo dispone el artículo 70 letra i) de la ley N° 19.300, sobre Bases Generales del Medio Ambiente ("ley N° 19.300"), es atribución del Ministerio del Medio Ambiente proponer políticas y formular planes, programas y acciones que establezcan los criterios básicos y las medidas preventivas para favorecer la recuperación y conservación de los recursos hídricos, genéticos, las plantas, algas, hongos y animales silvestres, los hábitats, los paisajes, ecosistemas y espacios naturales, en especial los frágiles y degradados, contribuyendo al cumplimiento de los convenios internacionales de conservación de la biodiversidad.
3. Que, el artículo 144 de la ley N° 21.600, que crea el Servicio de Biodiversidad y Áreas Protegidas y crea el Sistema Nacional de Áreas Protegidas ("ley N° 21.600"), reemplazó el artículo 37 de la ley N° 19.300, en orden a señalar que el mencionado Servicio deberá aprobar planes de recuperación, conservación y gestión de especies ("Planes Recoge"), de acuerdo con lo dispuesto en la referida ley.
4. Que, previo a la modificación indicada en el considerando precedente, el artículo 37 de la ley N° 19.300 atribuía la competencia para aprobar los Planes Recoge al Ministerio del Medio Ambiente.
5. Que el artículo primero transitorio de la ley N° 21.600 dispuso que será un decreto con fuerza de ley, que deberá ser dictado dentro del plazo de un año de publicada la Ley, el que establecerá la fecha en que el SBAP entrará en funcionamiento.
6. Que, el decreto con fuerza de ley N° 1, del Ministerio del Medio Ambiente, de 29 de enero de 2024, estableció en su artículo 3° que la entrada en funcionamiento del SBAP contemplará un período para su implementación, y otro de entrada en operaciones, añadiendo que el período de implementación se extenderá desde la publicación del referido decreto con fuerza de ley N° 1 en el Diario Oficial, hecho que sucedió el 09 de marzo de 2024, y hasta el día anterior a la fecha de su entrada en operaciones propiamente tal.
7. Que, atendido a que el SBAP se encuentra en un período de implementación, en la elaboración y aprobación de los Planes Recoge se debe seguir el principio de continuidad de la función pública, establecido en los artículos 3° y 28 de la ley N° 18.575, en virtud del cual los órganos de la Administración tienen por finalidad promover el bien común atendiendo las necesidades públicas en forma continua y permanente, por lo que la potestad para aprobar los Planes Recoge se mantiene en el Ministerio del Medio Ambiente, hasta la entrada en operaciones del SBAP (aplica criterio adoptado por la Contraloría General de la República, entre otros en su Dictamen N° 26190, de 2012).
8. Que, el decreto supremo N° 1, de 2014, del Ministerio del Medio Ambiente, que aprueba el Reglamento para la elaboración de Planes de Recuperación, Conservación y Gestión de Especies, define los Planes Recoge como un instrumento administrativo que contiene el conjunto de metas, objetivos y acciones que deberán ejecutarse para recuperar, conservar y manejar una o más especies que hubiesen sido clasificadas en el marco del reglamento para Clasificación de Especies Silvestres según Estado de Conservación.
9. Que, en el mismo sentido, el artículo 3° la ley N° 21.600, define al plan de manejo como aquel "instrumento de gestión ambiental basado en la mejor evidencia posible, que establece metas, principios, objetivos, criterios, medidas, plazos y responsabilidades para la gestión adaptativa de la biodiversidad", y al Plan de recuperación, conservación y gestión de especies como aquel "plan de manejo destinado a mejorar el estado de conservación de una o más especies clasificadas de conformidad a lo establecido en el artículo 37 de la ley N° 19.300".
10. Que, a través del decreto supremo N° 151, de 2006, del Ministerio Secretaría General de la Presidencia, que oficializó la primera Clasificación de Especies Silvestres según su Estado de Conservación, se clasificó al zorro chilote o de Darwin como En Peligro (EN), en dicha instancia bajo el nombre científico de Pseudalopex fulvipes (hoy denominado Lycalopex fulvipes como nombre científico actualmente vigente).
11. Que, el zorro chilote o de Darwin se encuentra en el referido estado de conservación debido a la ocurrencia de incendios forestales, presencia de perros sin tenencia responsable, desarrollo residencial en la zona rural, actividades silvoagropecuarias sin adecuadas consideraciones ambientales, así como otras actividades de origen antrópico que afectan su hábitat.
12. Que, siguiendo lo establecido en el artículo 21 del decreto supremo N° 1, de 2014, del Ministerio de Medio Ambiente, que aprueba el Reglamento para la elaboración de Planes de Recuperación, Conservación y Gestión de Especies, a través de resolución exenta N° 719, de 30 de junio de 2022, del Ministerio del Medio Ambiente, se dio inicio al procedimiento abreviado para la elaboración del Plan de Recuperación, Conservación y Gestión del zorro chilote o de Darwin (Lycalopex fulvipes).
13. Que, en conformidad con lo establecido en el artículo 71 letra f), de la ley N° 19.300, y en artículo 19 del decreto supremo N° 1, de 2014, del Ministerio de Medio Ambiente, el Consejo de Ministros para la Sustentabilidad y el Cambio Climático, en sesión ordinaria de 5 de julio de 2024, adoptó por unanimidad el acuerdo N° 14/2024, de proponer a S.E. el Presidente de la República, el Plan de Recuperación, Conservación y Gestión del zorro chilote o de Darwin (Lycalopex fulvipes).
Decreto:
Artículo Único. Apruébase el siguiente Plan de Recuperación, Conservación y Gestión del zorro chilote o de Darwin (Lycalopex fulvipes):
PLAN DE RECUPERACIÓN, CONSERVACIÓN Y GESTIÓN DEL ZORRO CHILOTE O DE DARWIN (Lycalopex fulvipes)
1. INTRODUCCIÓN
La presente propuesta de Plan de Recuperación, Conservación y Gestión (Recoge) del zorro chilote o de zorro de Darwin (Lycalopex fulvipes, antes denominado Pseudalopex fulvipes), para su área de distribución entre las regiones del Biobío y Los Lagos, es el resultado del esfuerzo colectivo de la academia, organizaciones no gubernamentales e instituciones públicas, y responde a los lineamientos del Ministerio del Medio Ambiente, en el marco del Reglamento de Planes de Recuperación, Conservación y Gestión de Especies (DS N° 1/2014 del Ministerio del Medio Ambiente). La especie se encuentra calificada como En Peligro de acuerdo con el decreto supremo N° 151/2006 del Ministerio Secretaría General de la Presidencia.
Asimismo, la propuesta da cumplimiento a lo señalado en el artículo 43 de la ley N° 21.600, que crea el Servicio de Biodiversidad y Áreas Protegidas, norma que establece los contenidos mínimos que debe poseer un Plan Recoge.
Los Planes Recoge forman parte de una batería de instrumentos de gestión de la política pública para la conservación de la biodiversidad del país, mencionados tanto en la ley N° 19.300, de Bases Generales sobre el Medio Ambiente, como en la ley N° 21.600. En particular, esta propuesta de Plan Recoge se vincula directamente con la Estrategia Nacional de Biodiversidad 2017-2030, principalmente en su primer y quinto objetivo estratégico relacionados con:
- "Promover el uso sustentable de la biodiversidad para el bienestar humano, reduciendo las amenazas sobre ecosistemas y especies".
- "Proteger y restaurar la biodiversidad y sus servicios ecosistémicos".
Dada la distribución geográfica de la especie objeto de este Plan, se contó con la participación de diferentes actores locales y regionales, de diversos sectores y de las regiones donde se tiene registro de la especie, quienes pusieron a disposición su experiencia, conocimiento e interés para colaborar y mejorar el estado de conservación del zorro chilote o de Darwin y sus hábitats.
La propuesta de Plan de Recuperación, Conservación y Gestión del zorro chilote o zorro de Darwin para las regiones del Biobío, La Araucanía, Los Ríos y Los Lagos, se presentó según lo establecido en el artículo 16 del DS N° 1/2014 del Ministerio del Medio Ambiente, para ser revisada por el Comité de Planes, y luego continuar su proceso de ingreso a consulta pública, según lo estipula el artículo 17 del mismo reglamento para, por último, obtener el pronunciamiento del Consejo de Ministros para la Sustentabilidad y el Cambio Climático.
De acuerdo con las reuniones realizadas desde el 2013, con participación de actores del mundo público y privado de todas las regiones de distribución del zorro, se estableció que se usaran "el zorro" o "zorro" para hablar de zorro chilote o zorro de Darwin indistintamente en este Plan. En todos los casos anteriores la mención se refiere a la especie Lycalopex fulvipes. De la misma manera, se reconocen otras denominaciones como "zorro azul" (Paynegürü) y "zorro de los brujos" (Kalkungürü).
2. METODOLOGÍA DE ELABORACIÓN DEL PLAN DEL ZORRO CHILOTE O DE DARWIN
La metodología utilizada para desarrollar los Planes Recoge es la de "Estándares de Conservación", desarrollado por la Alianza para las Medidas de Conservación (Conservation Measures Partnerships – CMP) en adelante, Estándares Abiertos. CMP es un consorcio de organizaciones de conservación cuya misión es avanzar en la práctica de la conservación, desarrollando, poniendo a prueba y promoviendo principios y herramientas para evaluar con credibilidad las acciones de conservación y mejorar su efectividad. Cada organización dentro de CMP tiene como una de sus principales metas la conservación de la biodiversidad, se centra en alcanzar resultados de conservación tangibles y está trabajando para mejorar los enfoques de diseño, gestión y evaluación de proyectos.
Para el desarrollo de este Plan Recoge, se desarrollaron talleres presenciales en las distintas regiones que componen el alcance del Plan (Biobío, La Araucanía, Los Ríos y Los Lagos), así como también talleres virtuales.
En este sentido y considerando el proceso de elaboración del Plan, es importante destacar el interés y preocupación de diversas instituciones públicas, academia, investigadores y ONG de las regiones en la conservación de esta especie, consolidando el trabajo que se ha descrito precedentemente y conlleva el esfuerzo de diversos actores, públicos y privados, con el objetivo final de contar con un instrumento formal de conservación y gestión de la especie zorro chilote o zorro de Darwin, en su área de distribución.
En este proceso, participaron representantes del Ministerio del Medio Ambiente, Corporación Nacional Forestal, Servicio Agrícola y Ganadero, Empresa Forestal Arauco, Universidad Autónoma, Universidad Católica de Temuco, Universidad San Sebastián, Universidad de Concepción, Fundación Nahuelbuta, Chiloé Silvestre, Buin Zoo, CECPAN y The Nature Conservancy.
3. ORGANISMO COORDINADOR Y FACILITADOR
Desde que se tomó la decisión de elaborar este Plan Recoge bajo el mecanismo abreviado, el Ministerio del Medio Ambiente ha contado con el apoyo de la academia, investigadores, servicios públicos y ONG de la Región del Biobío a la Región de Los Lagos (zona de distribución del zorro), donde los distintos actores han participado activamente de reuniones, talleres y terrenos vinculados a la elaboración del plan, trabajo que se inició en el 2013.
Sin embargo, se destaca el importante soporte del Centro de Conservación de la Biodiversidad Chiloé-Silvestre, quien ha apoyado activamente la realización de reuniones y talleres, así como ha contribuido en la elaboración de contenidos y capítulos que forman parte de este Plan.
El Centro de Conservación de la Biodiversidad Chiloé-Silvestre, es una organización comunitaria funcional creada bajo el amparo de la Municipalidad de Ancud en el año 2009, con el objetivo de contribuir a mejorar y asegurar la conservación de las especies de fauna silvestre y sus hábitats naturales.
4. ANTECEDENTES GENERALES SOBRE EL ZORRO CHILOTE
Clasificación taxonómica
- Nombre científico: Lycalopex fulvipes
- Reino: Animalia
- Phyllum: Chordata
- Clase: Mammalia
- Orden: Carnivora
- Familia: Canidae
- Género: Lycalopex
- Sinonimia: Canis fulvipes; Dusicyon fulvipes; Pseudalopex fulvipes.
- Nombres comunes: zorro de Chiloé, zorro chilote, zorro de Darwin, zorro azul, zorro chuponero, Paynegürü, Kalkungürü
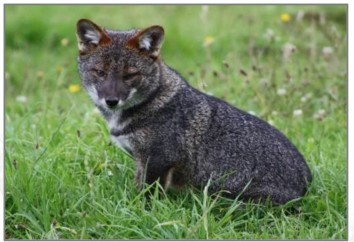
Figura 1. Zorro chilote o de Darwin (Fotografía – Javier Cabello)
Conocimiento tradicional sobre el zorro chilote
Destacan entre las diversas expresiones culturales, algunas referencias a la especie por su rol en la espiritualidad y tradición local. Por ejemplo, Reyes et al., 2010, relatan la participación de los zorros en la espiritualidad mapuche, especialmente como el animal tutelar de los espacios sagrados de Nahuelbuta que utilizarían en sus ceremonias los Kalkus, guerreros espirituales de linaje especial que trabajaba con las plantas en busca de conocimiento (Aldunate & Lienlaf 2002). Por ello se denominarían Kalkungürü, o "Mensajero de los Brujos" (Reyes et al. 2010).
En la Isla de Chiloé, los Huilliches lo denominaron como Payneguru, que significa zorro azul (Jiménez et al. 2008). Para la misma localidad, Plath (1983) sugiere la relación entre el zorro chilote y la figura mitológica Gurutregua (Ngerü=zorra/zorro y Tregua=perro) correspondiente a una zorra, a la cual "se le atribuyen propiedades funestas", especialmente al encontrársele en el camino o al matarle y mover su cuerpo de aquel lugar. Siguiendo a Reyes et al. (2010) con la llegada del cristianismo, se modificó el simbolismo original por uno maligno, relacionándolo al demonio y atribuyéndole características negativas a todo lo respectivo a ellos.
Descripción
El zorro chilote o de Darwin se caracteriza por su pelaje de color negro o azulado, a excepción de sus patas con manchas blancas y sus orejas de un vívido café rojizo (Iriarte 2008). Su cola es de color gris oscuro a negro, relativamente corta y bastante voluminosa. Su cuerpo es alargado y las patas cortas, otorgándole una apariencia robusta (Jiménez & McMahon 2004), la que se acentúa debido a su voluminoso pelaje, haciéndolo ver más pesado de lo que realmente es (Cabello 2019).
La pigmentación oscura del pelaje del cuerpo se corresponde con la subsistencia en un ambiente saturado de humedad (regla de Gloger) y como camuflaje en el ambiente oscuro que habita, cerca del suelo del bosque. Posee buenas condiciones para nadar, ya que ha sido observado nadando a través de un río de más de 15 metros de ancho en Chiloé. Esta capacidad podría permitirle moverse y dispersarse en un paisaje donde cuerpos de agua sean característicos (Jiménez & McMahon 2004).
Este zorro es el más pequeño de los tres zorros que habitan Chile y uno de los más pequeños del mundo (Vilà et al. 2004, Wayne et al. 2004). Además, es el carnívoro nativo terrestre más grande de la Isla de Chiloé; con una longitud total en promedio de 77,9 cm de largo, incluida la cola, y un peso adulto promedio de 3,4 kg variando de 2 a 4,7 kg, siendo las hembras un 4% más pequeñas que los machos y un 16% más livianas (2,0 a 4,3 kg hembras y 3,0 a 4,7 kg machos) (Cabello 2015). Su hocico es corto y delgado, y se extiende en una frente más bien redondeada. En Nahuelbuta, el zorro adulto es algo más oscuro, hocico más aguzado, orejas algo más grandes y pelaje menos voluminoso que en Chiloé (Cabello, observación personal). Su tamaño también es algo más pequeño que en Chiloé, con pesos de 1,9 a 2,8 Kg en machos y 1,8 a 2,5 Kg en Hembras (Jiménez & McMahon 2004).
Estudios realizados en cachorros de 4 a 5 meses de edad, señalan que el tamaño se encuentra entre 50% y 75% de su tamaño de adulto (McMahon 2003), siendo prácticamente indiferenciables con el tamaño de los adultos después de los 6 meses, aunque su peso sigue siendo menor hasta cerca del año (Cabello, observación personal).
Distribución territorial
Este zorro posee una de las distribuciones conocidas más pequeñas de todos los cánidos existentes (Vilà et al. 2004, Wayne et al. 2004), siendo endémico de la ecorregión de bosque valdiviano de Chile. Se conocen poblaciones de la Cordillera de Nahuelbuta, Costa de Valdivia, la Isla de Chiloé; y, existen registros de individuos en otras áreas continentales de Chile (D'Elía et al. 2013, Farías et al. 2014, Silva-Rodríguez et al. 2018).
La distribución insular, en los bosques de la Isla Grande de Chiloé (42°S, 74°W), posee 180 km de largo y 62 km de ancho, especialmente se concentra en el poniente de la isla, donde permanecen en bosques nativos (Jiménez & McMahon 2004), y en menor proporción en las zonas más pobladas del este y noreste donde existen parches de bosque nativo. La distribución continental más conocida es en la Cordillera de Nahuelbuta (37°45'S, 73°00 O), a unos 600 km al norte de la población de la isla, específicamente dentro y en torno al Parque Nacional Nahuelbuta de 68,3 km2 de superficie, donde los zorros sobreviven en bosques degradados rodeados por tierras cultivadas y plantaciones exóticas (Greer 1965).
Como se mencionó anteriormente, a partir del año 2013 se han publicado nuevos registros de la presencia del zorro, uno en la provincia de Cautín, región de La Araucanía, de un ejemplar atacado por perros (D'Elía et al. 2013) y por fototrampeo en tres áreas protegidas de la provincia de Valdivia, región de Los Ríos (Farías et al. 2014): en el Parque Nacional Alerce Costero, la Reserva Costera Valdiviana y el Parque Oncol. A estos registros fotográficos se suma uno el año 2019 en la Cordillera de Mahuidanche, también en La Araucanía (Figura 2), y capturas de ejemplares vivos realizadas en el Parque Oncol y la Reserva Costera Valdiviana en 2017. Finalmente, se reporta un registro cerca de Maullín (Silva-Rodríguez et al. 2016), lo que sugiere que la especie potencialmente se distribuiría entre el límite sur de la Reserva Costera Valdiviana (Río Bueno) y Maullín. Las cordilleras de Nahuelbuta y la costera de Valdivia están separadas por paisajes muy perturbados, con zonas agrícolas y forestales, lo que podría indicar que estos nuevos registros pueden pertenecer a poblaciones aisladas entre sí.
Reproducción 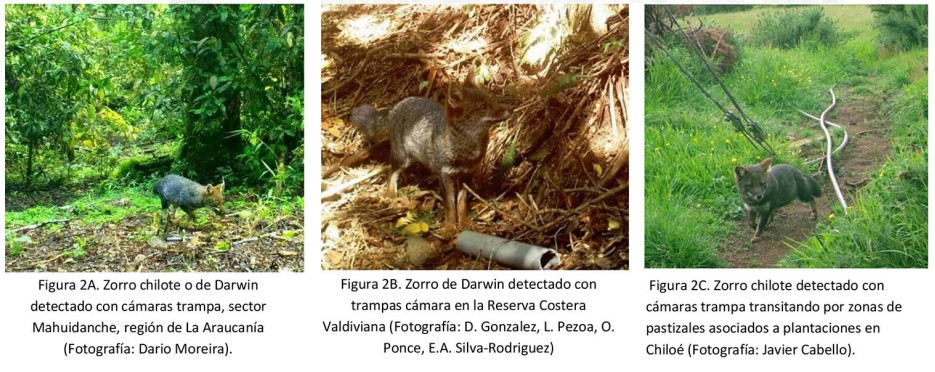 y longevidad
 Si bien se describe que es una especie solitaria, salvo en época reproductiva (Jiménez & McMahon 2004), se les suele ver en pareja todo el año (Cabello, 2019). En Nahuelbuta, el período reproductivo comienza en agosto, con pariciones de 2 o 3 cachorros en octubre que se destetan en febrero (Jiménez & McMahon 2004), instante en que la hembra pasa menor tiempo con las crías y la porción mayor de sus interacciones son antagónicas, mientras que el macho pasa la mayor parte del tiempo jugando y aseando a los cachorros (McMahon, no publ.). Todo este periodo, al menos, es un mes más tardío en Chiloé (Cabello 2019).
Poseen crianza biparental donde las crías abandonan el grupo familiar entre los 4 a 6 meses, permaneciendo en el lugar la pareja original. Si hay suficiente disponibilidad de alimento, las crías pueden permanecer en el lugar formando grupos de 5 o 6 individuos (Cabello 2019). Se desconoce su ciclo estral y su gestación, asumiendo períodos similares a otros cánidos.
En el Parque Nacional Nahuelbuta, entre las potenciales fuentes naturales de mortalidad de los zorros se encuentran los depredadores como el puma (Puma concolor), los zorros culpeo (Lycalopex culapeus) y la chilla (L. griseus). Antecedentes obtenidos a través de radio-collares, en el monitoreo de 29 individuos en cuatro años, atribuyeron la muerte de cinco zorros al puma. Las tasas de supervivencia de zorros con radio-collares en individuos juveniles y adultos son de 84% para hembras y 93% para machos. Al analizar las causas específicas de la tasa de mortalidad de la población continental, se obtiene que 74% de la mortalidad se debe a causas naturales, mientras que el 26% al ser humano (McMahon 2002). En el Parque Nacional Nahuelbuta han muerto zorros por atropellos en la carretera, existiendo casos en el estacionamiento del Parque, debido a que algunos individuos se habían habituado a la presencia del ser humano que regularmente los alimentaba y por la inexistencia de restricciones específicas de acercarse o alimentar a los zorros a los visitantes de este parque (McMahon 2002). No hay muertes por patógenos y parásitos reportados para la especie, aunque se han capturado animales famélicos longevos y con presencia de altas cargas de parásitos (Cabello, observación personal).
En la Isla de Chiloé, antecedentes entregados por lugareños indican que han matado zorros durante ataques a aves de corral y que otros han muerto atacados por perros, por cepos y atropellados, no encontrándose otras causas de mortalidad. Debido a capturas reiteradas en años consecutivos, se han estimado sobrevivencias de seis a siete años en un macho y de una hembra de aproximadamente cinco años (Cabello 2019).
Dieta
El zorro es omnívoro, tiene una dieta de amplio espectro y es muy oportunista, lo que favorece su supervivencia. Cambia su dieta según la disponibilidad de alimentos y los cambios del medio ambiente de acuerdo con las diferentes estaciones del año. Basado en el análisis de heces, Jaksic et al. (1990) y Jiménez et al. (1991) señalan que en Nahuelbuta el zorro se alimenta principalmente de mamíferos pequeños, reptiles, insectos, aves y arácnidos (en ese orden de importancia), cuya proporción varía según la estación del año, alimentándose principalmente de mamíferos como el ratón colilargo (Olygoryzomis longicaudatus) y el ratón oliváceo (Abrothrix olivacea), seguido de reptiles, insectos, aves y arácnidos. Investigaciones más recientes indican que la presa más abundante son los insectos, seguidos de pequeños mamíferos y reptiles, encontrando además la presencia de bayas en el 20% de las heces (Jiménez & McMahon 2004).
Particularmente en la región de La Araucanía, en la zona de Nahuelbuta, existen estudios que describen que los zorros chilotes o de Darwin basan su alimentación en gran medida de las semillas de araucaria (Araucaria araucana) durante los meses de marzo a mayo (McMahon, no publicado). Además, análisis realizados en las fecas durante los meses de verano, encontraron predominancia de restos de insectos y semillas en las heces.
En Chiloé, en la época estival se alimenta preferentemente de insectos, alcanzando hasta el 74% de las heces. En menor medida aparecen los vertebrados, además de frutos, mariscos, crustáceos, algas, carroña y eventualmente peces (Elgueta et al. 2007). En invierno los invertebrados son sustituidos por mayor consumo de micromamíferos. Durante el verano y el otoño, la dieta está compuesta casi en su totalidad de los frutos de los árboles mirtáceos. Por ello, Armesto et al. (1987) señalan que los zorros pueden ser considerados como una especie clave por su papel en la dispersión semillas de especies forestales, siendo el consumo de frutos casi tres veces más que en Nahuelbuta, principalmente de chupón o quiscal (Greigia sphacelata) (Elgueta et al. 2007), cuyas semillas aparecen abundantemente en las heces.
En otro estudio realizado en Chiloé, Jiménez (2007) analizaron las heces entre octubre del año 2000 y abril del año 2002 en la Isla de Chiloé, observando que la presa más abundante fueron los insectos, con un 34,7%, siendo principalmente grillos y escarabajos, seguido de crustáceos (22,5%), roedores (20%), aves (11,9%), anfibios (5,9%), ungulados (3,5%) y reptiles/marsupiales con igual número (0,7%). Además, se observó que se alimentan de dos tipos de especies de bromelias: Fascicularia sp. y G. sphacelata, en un promedio de entre 21 y 90 semillas por feca, respectivamente.
Los pudúes (Pudu puda) son las presas de mayor tamaño, pero no muy frecuentes, a los cuales persiguen hasta un río o el mar donde estos se introduzcan a nadar, para luego salir nuevamente ya cansados, donde finalmente 2 ó 3 zorros le dan caza (Cabello 2019).
El consumo de frutos si mostró un patrón temporal marcado en la dieta del zorro, dado que la disponibilidad de algunos elementos en la dieta es espacialmente muy localizada (Jiménez 2007). Otro estudio publicado por Elgueta et al. (2007) señalan que los zorros que viven en la zona costera de la Isla de Chiloé utilizan la arena de las playas para buscar alimentos marinos.
Comportamiento
En Chiloé el zorro es poco temeroso al ser humano, acercándose a las casas en el campo o a campamentos de trabajadores, quienes frecuentemente les proporcionan alimento. Su carácter poco precavido y osado ha facilitado su eliminación por parte de pobladores rurales, quienes los persiguen por su fama de frecuentar gallineros (Jiménez 2005). A diferencia de la Isla de Chiloé, en el continente este zorro vive en simpatría con los zorros chilla y culpeo, además de compartir hábitat con otros carnívoros, lo que los hace más esquivos, dificultando incluso las capturas científicas (Cabello 2019).
El rango de hogar estimado de este zorro varía entre 103 y 488 ha (Jiménez 2007). Basado en estimaciones del ámbito de hogar en 6 zorros y considerando su extensivo solapamiento (42-99%, Jiménez 2000), se calculó que la densidad del zorro chilote es de 0,95 individuos por km2 en Piruquina, Chiloé (Jiménez & McMahon 2004), similar a los 0,92 individuos por km2 obtenido por Jiménez (2007) en Ahuenco, una zona costera del noroeste de Chiloé, pero donde viven varios individuos gracias a la disponibilidad de alimento por parte de pobladores. Por otro lado, en el Parque Nacional Nahuelbuta, basado en capturas, se estimó una densidad de 1,14 individuos por km2 (Jiménez & McMahon 2004). Considerando los solapamientos entre zorros, cada individuo comparte su rango de hogar con 4.7 machos y 3.3 hembras, pareciendo ser una especie no territorial (Jiménez 2000).
Los padres comparten su rango de hogar con los hijos. Todos los miembros de la familia se asocian estrechamente, presentando un comportamiento poco agresivo entre los padres y la descendencia. Resultados preliminares de telemetría indican que existen grupos de individuos con traslape de rango de hogar, sin embargo, la superposición entre grupos es escasa. La mantención de un grupo familiar de gran tamaño puede estar influenciado por la escasez de territorios adecuados y hábitat para la potencial separación de los individuos juveniles (Jiménez & McMahon 2004).
Competencia interespecífica
En la Isla de Chiloé no existen datos que apoyen la competencia potencial del zorro con otros carnívoros, aunque comparte hábitat con la güiña (Leopardus guigna) y el quique (Galictis cuja). Para pequeños mamíferos, existe un competidor potencial que corresponde al concón (Strix rufipes). En cuanto a especies exóticas, el visón americano (Neovison vison) también podría ser un competidor potencial en esta isla.
En Nahuelbuta la población de zorros se superpone con seis especies de carnívoros: puma, zorro culpeo, zorro chilla, güiña, chingue (Conepatus chinga) y quique, siendo los tres primeros competidores potenciales y, a su vez, depredadores potenciales. Resultados obtenidos por McMahon (no publ.) indican que el zorro traslapa su rango de hogar y patrones de conducta con el zorro chilla, existiendo la posibilidad de competencia entre estas dos especies. Se encuentra en simpatría con otros carnívoros, moviéndose en bosques y áreas verdes, principalmente en la noche, cuando los pequeños mamíferos se encuentran activos y cuando el zorro gris es menos activo, por lo que el comportamiento nocturno puede estar motivado en evitar a los competidores, así como los posibles depredadores. Observaciones recientes con cámaras trampas en la zona de Caramávida (Nahuelbuta), también muestran la presencia del zorro culpeo en las mismas áreas que el zorro chilote o de Darwin, lo que lo mostraría como otro competidor y potencial depredador en su hábitat. En la misma zona, hay registros fotográficos de güiña y puma, lo que ampliaría la presión de potenciales depredadores en un hábitat, el que, a su vez, se reduce año a año (Jiménez, Com. Pers).
Ecología y hábitat
El zorro chilote o de Darwin, se menciona como una especie obligada de bosque, encontrándose únicamente en zonas de densa vegetación (Jaksic et al. 1990, Medel et al. 1990), sin embargo, se ha encontrado que, aunque prefiere bosque maduro, como los bosques mixtos de araucaria en la Cordillera de Nahuelbuta y la selva valdiviana en Chiloé, también transita por bosques secundarios, pasturas aledañas, áreas pantanosas de baja altura (Jiménez & McMahon 2004), playas (Elgueta et al. 2007) y dunas (Cabello 2019). En Nahuelbuta están asociados positivamente con la disponibilidad de bosque nativo y asociados negativamente con las carreteras, describiéndose, además, que las plantaciones comerciales también pudiesen proporcionar recursos de hábitat y alimentos complementarios (Moreira-Arce et al. 2015).
En la costa del Pacífico de Chiloé, el hábitat del zorro es una combinación de ambientes fragmentados de las dunas costeras y el bosque siempreverde denso y en la parte norte de la isla, habita en un paisaje fragmentado, relativamente plano, de bosques de hoja ancha y pastizales (Jiménez & McMahon 2004).
Estimación poblacional
En base a las densidades descritas, se había estimado poblaciones de 250 a 500 individuos en la Isla de Chiloé (Jiménez & McMahon 2004, Yahnke et al. 1996) y entre 50 a 78 zorros en Nahuelbuta (Cofré & Marquet 1999, Jiménez & McMahon 2004). Sin embargo, recientemente se han realizado estimaciones basadas en la ocupación del hábitat, calculándose un mínimo de 412 individuos maduros en Chiloé y 227 individuos maduros en el continente donde el zorro está presente. Si se consideran las áreas donde potencialmente existe el zorro, el tamaño mínimo de población continental se acercaría a 489 individuos (Silva-Rodriguez et al. 2016).
Observaciones particulares indican que este zorro es una especie rara en la zona norte y cerca de las ciudades al noreste y este de la Isla de Chiloé, avistándose eventualmente en los parches de bosque nativo de esas zonas. Contrariamente a lo que se cree, es bastante común en zonas boscosas y playas en el lado oeste de la Isla de Chiloé (Cabello, observación personal).
Antecedentes genéticos de la especie
En un estudio genético molecular realizado en 99 zorros (Cabello 2019), muestreados en cinco zonas geográficas (Chiloé, Nahuelbuta, Gorbea, Oncol y Reserva Costera Valdiviana), se identificaron 6 haplotipos de la región control mitocondrial, agrupados en un clado monofilético. Destaca que un solo haplotipo fue encontrado en Chiloé; dos haplotipos en Nahuelbuta, de los cuales uno fue encontrado en un solo individuo; uno en un único individuo de Gorbea, uno en dos animales de Oncol y uno en tres individuos capturados en la Reserva Costera Valdiviana.
Los únicos 6 haplotipos encontrados denotan una muy baja variabilidad haplotípica en comparación con los encontrados en los pocos zorros culpeo (7 haplotipos en solo 14 individuos) y zorros chilla (11/23) analizados en este mismo estudio (Cabello 2019) y, con los 10 haplotipos encontrados en el lobo etíope (Canis simensis) (Gotelli et al. 2004). Si bien no se han encontrado más haplotipos en los zorros de los descritos hasta ahora y, aunque hay varios datos de una distribución más continua del zorro chilote o de Darwin a lo largo de los fragmentos de bosque nativo desde la Araucanía hasta la Isla de Chiloé (Farías, et al. 2014, Silva-Rodríguez et al. 2018, Escobar et al. 2018, Cabello 2019), aún no se puede determinar cuántas poblaciones podrían existir.
Por otro lado, se encontró una variación extremadamente baja de loci MHC en los 99 zorros, con solo dos alelos del gen DRB con la mínima variación entre ellos (Cabello 2019). Los mismos alelos de MHC se comparten entre las poblaciones de zorro chilote de la Isla y el continente, lo que podría indicar que la especie sufrió un cuello de botella antes de que los zorros de Chiloé y el continente se desconectaran. Esto sugiere que esta especie ha estado lidiando con los escasos alelos desde hace varios miles de años hasta el presente (Cabello 2019). Si bien una reducción en la variación de MHC está asociada a una alta susceptibilidad a enfermedades infecciosas (Paterson et al. 1998, Hedrick & Kim 2000, Lachish et al. 2007), casi la totalidad de los zorros muestreados se encontraron clínicamente sanos (Cabello 2019).
Finalmente, el análisis de microsatélites reveló que la población de Chiloé tuvo 7 alelos exclusivos (26,9%), 8 en Nahuelbuta (22,8%), 1 en 3 muestras de la Reserva Costera Valdiviana, 3 en 2 muestras de Oncol y 1 en una sola muestra de Gorbea. Además, un alelo fue compartido sólo entre Oncol y Gorbea (Cabello 2019) lo que refuerza la idea de nuevas poblaciones continentales, las cuales estarían aisladas entre sí, no existiendo flujo genético entre ellas. Esta diversidad genética encontrada en el análisis de microsatélites también mostró ser muy baja en general, siendo más baja en la Isla de Chiloé que en Nahuelbuta, a pesar de su aparente mayor tamaño poblacional.
La escasa variabilidad genética encontrada en el zorro chilote nos hace pensar en una menor capacidad de reacción ante la estocasticidad, como la introducción del virus del distémper que puede causar reducciones catastróficas en poblaciones de cánidos como las sospechadas en el zorro gris de las islas (Urocyon littoralis catalinae) (Timm et al. 2009) o la sarna, que también ha causado una severa reducción poblacional en zorros árticos (Ploshnitsa et al. 2012), ambas enfermedades transmitidas por perros. Esto podría llevar a una mayor reducción de la diversidad genética, con una mayor susceptibilidad a infecciones y con una esperada pérdida de la eficacia biológica (O'Brien & Evermann 1988, Hughes 1991, Hedrick 2001) pudiendo entrar la especie en un vórtice de extinción.
Estado de las poblaciones de zorro
La evaluación del estado de las poblaciones de zorro se realizó a través del Análisis de Viabilidad que consiste en determinar, de acuerdo a la mejor información disponible, el estado actual de la especie.
En esta etapa del Plan, identificó solo "Sitios de ocupación (presencia/ausencia)" como atributo ecológico clave, que será evaluado de manera diferenciada por cada región (Tabla 1). Dado que la metodología difiere entre las regiones y la información es insuficiente para establecer rangos cuantitativos para establecer el estado en que se encuentran las poblaciones, se realizó una evaluación simple determinando 4 rangos cualitativos de la condición de cada población, pobre, regular, buena o muy buena, en base a los antecedentes recopilados y la opinión de expertos.
Tabla 1. Estado de las poblaciones de zorro según Atributo Ecológico Clave
5. DIAGNÓSTICO DE LAS AMENAZAS Y SUS EFECTOS
Las amenazas d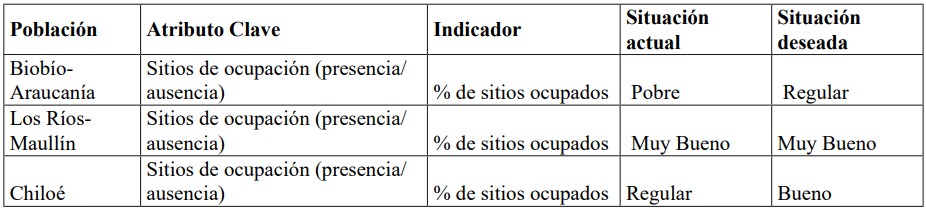 irectas están definidas globalmente por la Unión Internacional para la Conservación de la Naturaleza (UICN) y corresponden a actividades humanas (o de origen humano) que degradan de forma inmediata los objetos de conservación (por ejemplo: pesca y cacería no sostenible, perforaciones petroleras, construcción de carreteras, aguas residuales industriales o la introducción de especies exóticas invasoras), pero también pueden ser fenómenos naturales alterados por la actividad humana (por ejemplo: aumento en el número de tormentas extremas o evaporación aumentada debido a los efectos del cambio climático).
 Para representar la visión territorial sobre las amenazas que afectan al zorro, una vez identificadas de manera general, estas fueron evaluadas de manera particular separando, según el alcance en la distribución del zorro, en 3 principales territorios: 1) Biobío y La Araucanía (Cordón de Nahuelbuta), 2) La Araucanía y Los Ríos, particularmente el cordón de Mahuidanche, Oncol y Chaihuín, y 3) Los Lagos (Isla de Chiloé).
A continuación, se describen las amenazas que afectan al zorro:
5.1 Plantaciones forestales (extensión y manejo intensivo)
La fragmentación de bosques naturales es una de las principales causas de pérdida de biodiversidad en el mundo, los efectos de la fragmentación a escala de paisaje se ven expresados en la disminución del tamaño y calidad del hábitat boscoso, el aumento de borde y número de parches, y la pérdida de conectividad (Otavo & Echeverría 2017). Se ha constatado que la continua fragmentación y pérdida de bosques tropicales y templados han afectado la riqueza y estructura del bosque, la abundancia y diversidad de aves, el ensamble de comunidades de insectos y la persistencia de poblaciones de mamíferos, entre otros (Barbosa & Marquet 2002, Castelletta et al. 2005, De Angelo et al. 2011, Echeverría et al. 2007, Stratford & Stouffer 2015).
Durante los últimos cuarenta años, la actividad forestal se ha posicionado como uno de los principales elementos del paisaje de la zona centro-sur del país, cubriendo extensas zonas de territorio, las que anteriormente fueron destinadas a la agricultura o presentaban bosque nativo.
El establecimiento de plantaciones forestales, en especial el Eucalyptus spp. y Pinus spp., son en la actualidad la matriz dominante en la cordillera de la costa, entre las regiones de O'Higgins y de La Araucanía. Según Heilmayr et al. (2016) las plantaciones forestales exóticas pueden reducir la presión (cosecha) de bosque nativo, pero la escasez de territorio genera competencia, por tanto, las plantaciones van desplazando al bosque nativo, relegándolo a una distribución reducida y fragmentada, reduciendo su biodiversidad (Barlow et al. 2007, Stephens & Wagner 2007), favoreciendo la introducción de especies invasoras (Richardson 1998, p. 199), afectando negativamente la hidrología local (Jackson et al. 2005, Little et al. 2009), e incrementando la erosión (Oyarzun & Pena 1995), reduciendo así el hábitat disponible para el zorro chilote. Lo anterior se evidencia también en la Evaluación Global de Recursos Forestales (FRA) de la ONU (FAO, 2010) que indica que Chile ha experimentado una transición forestal, y varios análisis regionales destacan la pérdida continua de bosque nativo (Clapp 2001, Echeverría et al. 2006, Echeverría et al. 2012, Lara et al. 2012).
Aunque las causas inmediatas de la pérdida de bosque nativo varían dramáticamente por región, la aprobación del decreto ley 701 (D.L. 701) de 1974, impulsó en Chile la rápida expansión de plantaciones forestales en el último cuarto del siglo XX. Si en 1980 las plantaciones cubrían 740.000 ha, diez años después se había más que duplicado la superficie de éstas, llegando a 1,7 millones de ha (FAO, 2010). Un territorio fuertemente afectado fue el sector costero de las regiones del Maule y Biobío, donde más de dos tercios (81.000 ha) de todos sus bosques se perdieron entre los años 1975 y 1990, debido principalmente a la expansión agrícola y de plantaciones (Echeverría et al. 2006). Sin embargo, la mayoría de la conversión forestal fue causada por la expansión de las plantaciones forestales, donde el 16,3% de los bosques nativos en pie en 1986 habían sido convertidos en plantaciones al 2011. En el valle central de estas regiones también disminuyó el bosque nativo en un 20% (132.000 ha) transformándose a plantaciones entre 1979 y 2000 (Aguayo et al. 2009). Asimismo, entre 1986 y 2001, el 6% (98.000 ha) de las selvas Valdiviana de las regiones de Los Ríos y Los Lagos se convirtieron a plantaciones (Holt et al. 2012). A escala nacional, INFOR encontró que medio millón de hectáreas adicionales de bosques habían sido talados en 1995 (INFOR & CORFO 1996). En Chiloé, los estudios de CONAF y UACh 2013, dan cuenta de una disminución de 10.268 ha de bosque nativo entre 1998 y el 2013, mientras que las plantaciones forestales aumentaron de 623 a 5.443 ha, lo que equivale a un incremento de 873%. Sin embargo, en estas regiones la conversión a arbusto fue la principal causa inmediata de pérdida de bosques, donde la sustitución del bosque fue a causa principalmente de incendio en la Isla de Chiloé y la erupción del volcán Chaitén. Por último, cabe señalar que, si bien la expansión de las plantaciones también jugó un papel importante en la tala de bosques en La Araucanía, la expansión agrícola fue la causa dominante (Figura 3).
Figura 3. Transiciones de bosque nativo a otros usos de la tierra en la Región de Valpara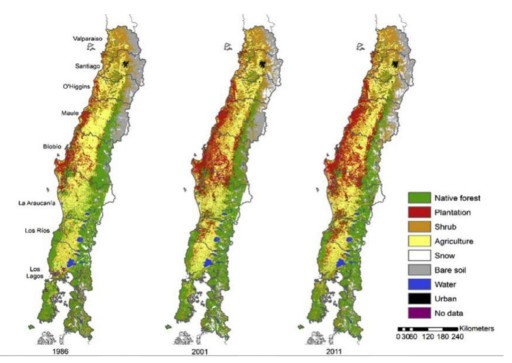 íso y de Los Lagos. Verde: Bosque nativo, Rojo: Plantación forestal, Naranjo: Matorral, Amarillo: Agricultura, Blanco: Nieve, Gris: suelo descubierto, Azul: Agua, Negro: Urbano, Morado: Sin dato (Fuente: Heilmayr et al. 2016).
 De los 35 hotspot identificados a nivel mundial, zonas de alto valor para la conservación de la biodiversidad, el que se distribuye en Chile en la zona centro-sur incluye a la Cordillera de Nahuelbuta y concentra más de la mitad de los bosques templados del hemisferio sur, albergando un total de 3.893 especies de plantas vasculares nativas, el 50% de ellas endémicas (Mittermeier et al. 2011). Según Otavo & Echeverría (2017); "La alta riqueza de especies y endemismo de la cordillera de Nahuelbuta se atribuye al hecho que los bosques deciduos y matorrales característicos de la zona mediterránea del norte de Chile convergen con la vegetación siempreverde valdiviana del sur de Chile, formando un singular ecosistema ecotonal y por poseer especies remanentes desde el Mesozoico de origen Gondwánico, y especies del Terciario de origen tropical (Smith-Ramírez 2004)".
La pérdida y degradación del bosque nativo en Nahuelbuta está directamente relacionada con la sustitución de bosque nativo por plantaciones forestales, incendios forestales, extracción de leña, agricultura intensiva y sobreexplotación de especies nativas (Smith Ramírez 2004, Wolodarsky-Franke & Díaz 2011), lo cual ha afectado la flora y fauna endémicas presente en este territorio, como son: árboles de queule (Gomortega keule) y pitao (Pitavia punctata); anfibios, ranita de Darwin (Rhinoderma darwinii), sapo de Contulmo (Eupsophus contulmoensis), mamíferos, el zorro de Darwin y el marsupial (Dromiciops gliroides) (Hechenleitner et al. 2005, Wolodarsky-Franke & Díaz 2011). Según Otavo & Echeverría (2017) la pérdida cobertura boscosa en el hotspot de biodiversidad, fue del 33,2% a una tasa de deforestación del 1,6% anual entre 1986 y 2011. Esta pérdida fue más intensa en bosques nativos primarios (49%) que en bosques nativos secundarios (28%), y ocurrió principalmente por la sustitución a plantaciones forestales exóticas (Otavo & Echeverría 2017) (Figura 4). Otros estudios indican que esta pérdida de bosque también comenzó el año 1979, donde hasta el 2000 ya existía una pérdida neta de bosque nativo del 28,2% a una tasa de deforestación del 1,6% anual (Aguayo et al. 2009). De este porcentaje de pérdida, el 71,7% ocurrió por sustitución de bosque a plantaciones forestales exóticas (Aguayo et al. 2009).
Figura 4. Variación espacio-temporal y porcentaje del área ocupada por los tipos de cobertura del suelo en 19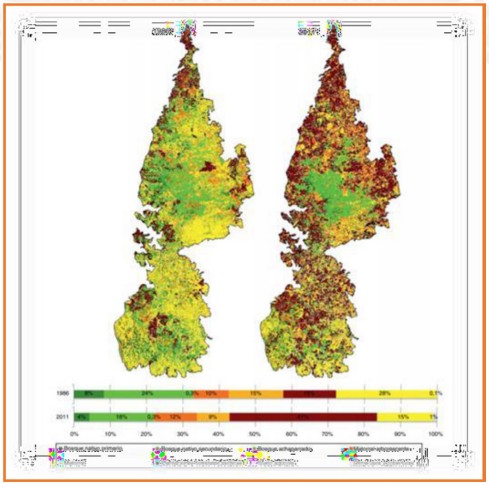 86 y 2011 en la cordillera de Nahuelbuta. Fuente: Otavo & Echeverría (2017).
 5.2 Incendios Forestales
En la última década, se ha visto un incremento en la ocurrencia y voracidad de los incendios forestales en la zona centro sur del país, afectado diversos hábitats y en particular bosque nativo, hábitat del zorro chilote. Con esto disminuye la disponibilidad de refugio, alimento, conectividad con otros parches de bosque, etc., dejando a la especie expuesta a otras amenazas.
Para el período 1976-2018, la mayor ocurrencia de incendios se concentró entre las regiones de Valparaíso y Araucanía, principalmente en la cordillera de la costa (Lara et al. 2019). En base a información geoespacial de incendios de CONAF, es posible identificar que en las regiones de distribución de la especie (Biobío, Araucanía, Los Ríos y Los Lagos), se han registrado más de 25.000 incendios en las temporadas de verano entre el 2010 y el 2017. Registrándose en noviembre del año 2016 uno de los incendios más grandes. En tal período, de este grupo de regiones de la zona centro-sur, la más afectada por incendios forestales corresponde a la del Biobío, con más de 14.000 incendios registrados. La cordillera de Nahuelbuta destaca como un área especial de amenaza. A modo de ejemplo, estableciendo un área de influencia de 20 kilómetros de radio de los puntos con presencia de la especie, se han registrado más de 4.000 incendios entre 2010 y 2017, habiendo consumido más de 8.000 hectáreas. El mismo ejercicio en Mahuidanche (Región de la Araucanía) se contabiliza 438 hectáreas afectadas, en la zona costera de la región de Los Ríos 1.138 hectáreas afectadas y 4.379 hectáreas afectadas en Chiloé. De esta última, aproximadamente un 36% correspondía a cubierta de bosque. A nivel país, la superficie afectada en esta área de influencia de la presencia de la especie, la mitad corresponde a plantaciones forestales, un 43% a otras cubiertas como matorral y pastizal y un 7% a cubierta agrícola.
Por su parte, CONAF en su reporte de 2017, se refiere al mega incendio del 2016-2017 señalando que "el 93% de las 518.174 ha afectadas por los incendios forestales ocurridos ese año, corresponde a formaciones vegetales", de las cuales alrededor de 89.347 hectáreas se asocian a bosque nativo.
El origen de los incendios es principalmente por causas humanas y menos del 1% de los incendios son de origen natural (Lara et al. 2019). También existe una relación entre el aumento de la accesibilidad (creación o mejoramiento de caminos) y la ampliación de la actividad forestal (incluyendo las especies exóticas invasoras que proliferan a su alero). En las áreas de distribución de la especie, pudiese generar un efecto sinérgico, aumentando con ello la posibilidad de incendios. De forma anexa, en la última década la zona centro-sur ha experimentado una intensa y prolongada megasequía con un fuerte impacto en el régimen de incendios (Lara et al. 2019), ver Figura 5.
Figura 5. Incendios forestales en áreas de interés para la conservación del zorro (Fuente: Recopilación MMA FAO G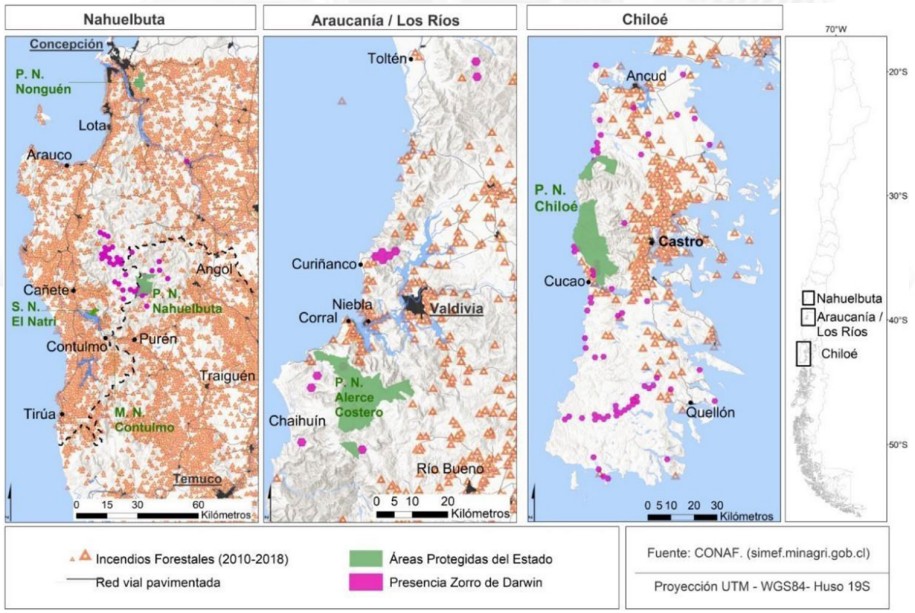 EF Conservación de Especies Amenazadas).
 5.3 Presencia de perros (y gatos) sin tenencia responsable
En las áreas rurales, los perros se encuentran en gran medida deambulando libres, es decir, no se encuentran confinados en sus hogares, o no tienen un cuidador que se haga cargo de ellos. Esto les da la oportunidad de explorar y recorrer grandes distancias pudiendo constituirse en una amenaza significativa para los zorros en las áreas naturales (protegidas o no protegidas). Los perros tienen conductas depredadoras y de hostigamiento sobre la fauna silvestre y pueden transmitir enfermedades que afectan el bienestar o la sobrevida de especies nativas.
En la zona de Nahuelbuta, en la que se distribuye una de las poblaciones más conocidas del zorro, se observa una alta presencia de perros en torno al Parque Nacional Nahuelbuta, con 2,66 perros en promedio por cada vivienda, con un rango de 1 a 7. Otro dato de relevancia en este territorio es el uso dado a los cánidos, donde el 74% tiene una utilidad de guardián o cuidado de la propiedad, el 22% de compañía, el 3% perros pastores de ganado, y el 1% como perros de caza denominados localmente "zorreros" (Ministerio del Medio Ambiente 2014).
De acuerdo con Mery (2016), para el caso de Nahuelbuta, más del 97% de los encuestados mantiene sus perros no confinados a los límites prediales de sus viviendas, lo que permite que lleguen a las mismas zonas del zorro como se muestra en la Figura 6.
Figura 6. Mapa que muestra la presencia de perros con respecto a la presencia de zorro de Darwin en Nahuelbuta (F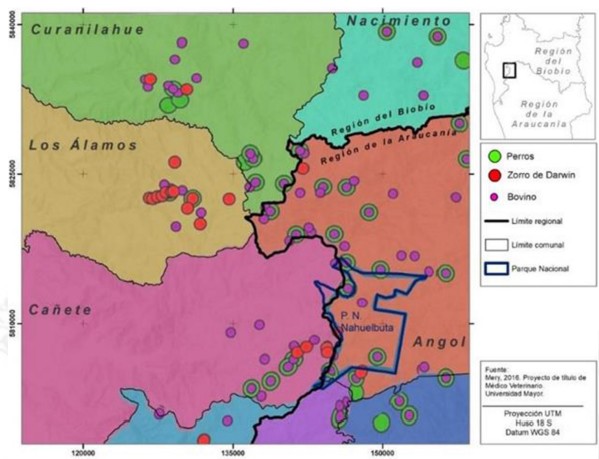 uente: Mery 2016).
 En la Figura 7, se muestra la probabilidad de encuentro de zorro y los perros (rojo: alta probabilidad y verde oscuro: menor probabilidad).
Figura 7. Mapa de probabilidad de encuentro de zorros de Darwin con perros en la cordillera de Nahuelbuta (Fuente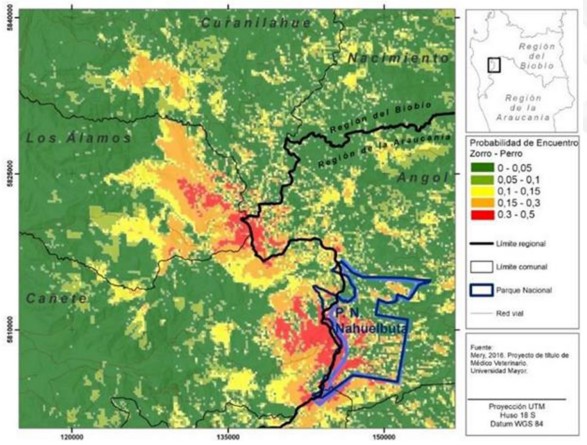 : Mery 2016).
 De manera similar, en la Región de Los Ríos, tanto en el Parque Nacional Alerce Costero como en la Reserva Costera Valdiviana (área protegida privada administrada por The Nature Conservancy), se ha identificado la presencia de perros en las mismas zonas en que se ha registrado el zorro. En estos casos, la presencia se asocia a los bordes de las áreas protegidas, en sectores de baja densidad humana (Figura 8) (Vásquez 2020).
Figura 8: Distribución espacial de perros en la Reserva Costera Valdiviana y Parque Nacional Alerce Costero. En c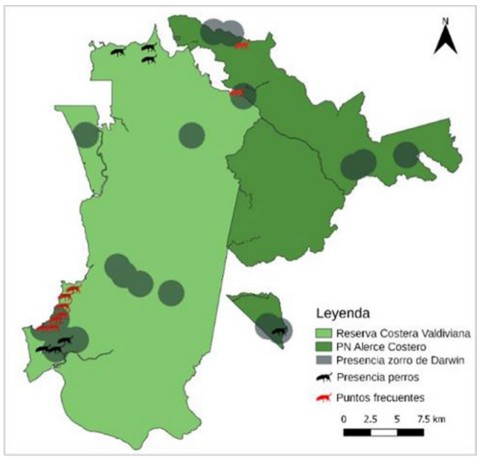 olor negro se presentan los sitios con detección en una sola ocasión y en rojo los puntos frecuentes (Vásquez 2020).
 Por otro lado, la falta de información y sensibilización de la población sobre los efectos negativos de las mascotas de vida libre y de mascotas abandonadas, han propiciado que exista una presión permanente en las áreas rurales sobre la fauna nativa. Sumado a lo anterior, una débil capacidad de fiscalización por parte de la autoridad competente redunda en las malas prácticas por parte de los tenedores de mascotas.
El manejo sanitario (vacunación y desparasitación) de los perros en la zona del cordón de Nahuelbuta entre el Biobío y La Araucanía es bajo, ya que más el 80% de los perros no cuentan con sus vacunas, sobre el 40% no está desparasitado y las esterilizaciones no alcanzan el 12% (Tabla 2).
Tabla 2. Resultados de encuestas realizadas en Cordillera de Nahuelbuta (MMA 2014)
- Transmisión de enfermedades de mascotas a fauna silvestre
El conocimiento sobre la susceptibilidad del zo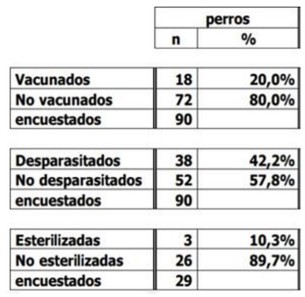 rro chilote a las enfermedades infecciosas era, hasta hace 10 años, bastante limitado o inexistente. Durante la última década se han generado varias publicaciones científicas y tesis de pregrado que confirman la relevancia y amenaza que representan las enfermedades para la supervivencia de la especie (Cabello et al. 2013a, Cabello et al. 2013b, Hidalgo-Hermoso et al. 2020, Di Cataldo et al. 2020, Kroeger & Hidalgo-Hermoso 2016, Hidalgo & Hidalgo-Hermoso 2020). Sumado a los riesgos generados por las enfermedades, se encuentran factores como: la baja cantidad de individuos, la fragmentación de sus hábitats, la baja diversidad genética y de MHC de dichas poblaciones, la presencia de perros y especialmente cerca de las poblaciones más sensibles a factores estocásticos como son las poblaciones del continente. Todo eso unido convierte al zorro chilote en una especie altamente sensible a sufrir procesos de extinción local o total, debido a posibles epidemias por enfermedades infecciosas.
 Dentro de las enfermedades infecciosas, las causadas por micro parásitos (bacterias, virus y protozoos) han generado una gran cantidad de emergencias sanitarias en carnívoros silvestres en Chile y a lo largo del mundo, por lo cual el monitoreo se ha enfocado en este grupo de patógenos. Los hallazgos a la fecha muestran que al igual que en otras especies de cánidos silvestres, el distémper canino es la principal amenaza para la conservación de esta especie (Hidalgo-Hermoso et al. 2020). El hallazgo de ausencia de anticuerpos a este patógeno en distintas poblaciones de zorro chilote a lo largo de su distribución no solo lo hace más susceptible a la ocurrencia de brotes mortales, sino que puede ser un reflejo de una alta mortalidad no detectada, esto debido a que no existen programas de vigilancia sanitaria en especies silvestres en Chile.
La alta prevalencia (56,6%) de Mycoplasma haemocanis en las poblaciones de zorro chilote en la Provincia de Chiloé contrasta con la presentación de signos clínicos o alteraciones fisiológicas que puedan permitir concluir que este agente infeccioso afecta a la especie (Di Cataldo et al. 2020). Los hallazgos de Cabello et al. (2013) y Di Cataldo et al. (2020) indican que este patógeno de perros es enzoótico en los zorros chilotes y que predomina la transmisión intraespecífica. Un nuevo gammaherpesvirus para la ciencia, denominado preliminarmente canid herpesvirus 2, fue detectado en un porcentaje de prevalencia alto (14,2%) en zorro chilote en la Provincia de Chiloé. Sin embargo, no se observaron lesiones o síntomas clínicos en los zorros infectados por este virus (Cabello et al. 2013).
También se ha evidenciado una alta prevalencia de anticuerpos (80%) de Toxoplasma gondii en zorro chilote, la cual no está asociada al grado de antropización de las diferentes poblaciones monitoreadas (Hidalgo & Hidalgo-Hermoso 2020). Otro agente zoonótico, Leptospira interrogans, presentó un 14% de exposición, identificándose serovariedades patogénicas para los cánidos (Hidalgo- Hermoso comunicación personal). Ambos agentes representan un riesgo de mortalidad individual para el zorro chilote, el que puede ser relevante en poblaciones muy pequeñas y altamente fragmentadas como la de la Cordillera de Nahuelbuta.
Los resultados sugieren que es necesario profundizar en el estudio del impacto del distémper canino, Toxoplasma gondii y Leptospira interrogans en las poblaciones de zorro chilote, así como la utilidad de la vacunación de perros en la prevención y control del distémper canino en los hábitats de zorro.
5.4 Infraestructura vial (planificación y diseño) y proyectos de inversión
a. Infraestructura vial
La existencia y/o mejoramiento de caminos a través de la pavimentación, genera un aumento en el uso de éstos, y trae como consecuencia una serie de presiones y amenazas sobre la fauna silvestre que se desplaza de un área a otra, viéndose obligados muchas veces a cruzar estos caminos, entre ellos los zorros. Los caminos en general funcionan como líneas que fragmentan hábitats, a su vez, el mejoramiento de las carpetas permite aumentar la velocidad, y con ello aumenta la probabilidad de atropellos de individuos. A la fecha, existe en La Araucanía el registro de atropello de un individuo de zorro chilote en el sector de Gorbea y en el sector de Molulco, en la comuna de Quellón, en Chiloé.
Asimismo, la apertura y/o mejora de caminos públicos próximo o dentro de áreas naturales y áreas protegidas, facilita el acceso y la presión sobre estas áreas. Por ejemplo, la apertura o mejoramiento de caminos públicos y privados para el tránsito de turistas puede favorecer el conocimiento del hábitat de la especie y promover la economía local, pero sin la gestión y difusión de las buenas prácticas turísticas correspondientes, puede traer consigo el aumento de atropellos de especies nativas como el zorro.
Actualmente, las proyecciones de caminos y su construcción afectan toda el área de distribución de la especie (Figura 9). Uno de los ejemplos claros es el Parque Nacional Nahuelbuta en el que habrá un mejoramiento de la carpeta del camino que atraviesa el parque que une ambas regiones (Biobío y La Araucanía). Esta situación aumentará la velocidad y la cantidad de vehículos que utilizarán dicha ruta.
Figura 9. Red de caminos en torno a las áreas de distribución del zorro (Fuente: Recopilación MMA FAO GEF Conservación de Esp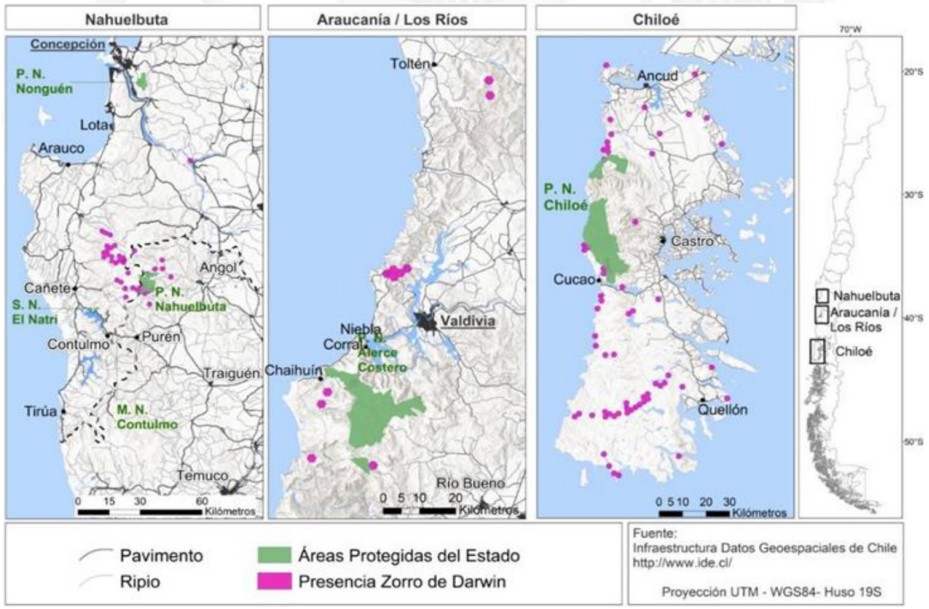 ecies Amenazadas).
 En la Región de Los Ríos se encuentran algunos proyectos viales, en la Cordillera de la Costa, que se presentan como amenaza potencial directa con la distribución de la especie.
. El tramo Chaihuín-Río Bueno, dentro de la Reserva Costera Valdiviana, proyecto que no será sometido a evaluación ambiental (SEIA), acorde con la Consulta de Pertinencia que fue realizada por parte del MOP.
. El tramo Río Lingue-Oncol que mejora la ruta, pero abre un tramo de 6 hectáreas de bosque nativo. Este mejoramiento aumentará la probabilidad de atropello de fauna silvestre, pero también el acceso y presión sobre su hábitat (Figura 10). Este proyecto corresponde a la conexión vial entre Sector: Mehuín – Pichicullín, actualmente en etapa de licitación para ejecución de obras, incluyendo bases de licitación ambientales y plan de manejo integral.
Figura 10: Localización de proyecto de "Construcción Conexión vial Ruta Costera, Sector Mehuín - Niebla, Tramo Mehuín – Oncol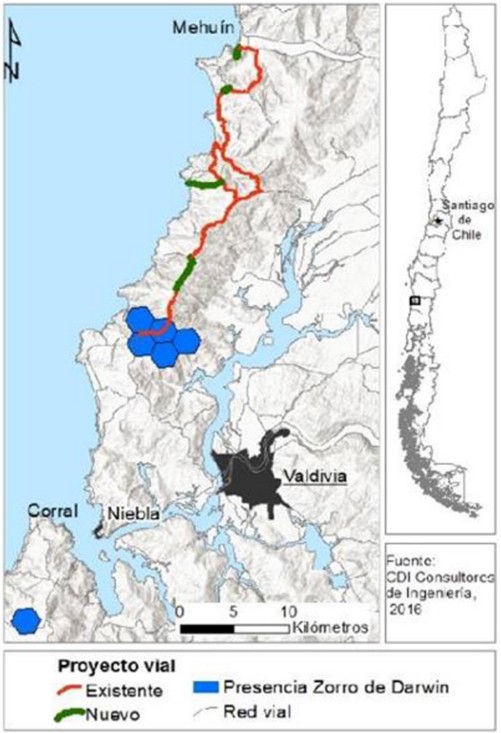 , Región de Los Ríos. (Fuente: Recopilación MMA FAO GEF Conservación de Especies Amenazadas).
 . El tramo Oncol-Valdivia, corresponde a la construcción de la Ruta T-340 actualmente en fase final de ejecución por parte del MOP. No fue evaluado dentro del SEIA, en consideración de la Consulta de Pertinencia efectuada. Se encuentra dentro de Sitio Prioritario Curiñanco, una zona ZOIT y territorio de zorro de Darwin.
. Concesión Ruta 5 Tramo Chacao – Chonchi: Corresponde al mejoramiento de la Ruta 5 en Chiloé, entre el acceso sur del nuevo puente sobre el Canal de Chacao y la bifurcación norte a Chonchi, con una longitud aproximada de 126 km. Incluye la construcción de un segundo puente sobre el río Pudeto y un baipás corto de 1 km en la ciudad de Ancud. Adicionalmente, se considera la mantención y operación del baipás en la ciudad de Castro (16 km) construido por el MOP.
b. Proyectos de inversión
El emplazamiento de proyectos de inversión en o próximos a áreas con presencia de zorros, genera una presión sobre la especie y hábitat, cuya principal consecuencia es la fragmentación y la destrucción de su hábitat. Ejemplo de ello, son los proyectos de generación eléctrica que, en la Isla de Chiloé y la Cordillera de la Costa de la Región de Los Ríos, se encuentran muy próximos a la presencia de la especie (Figura 11):
Figura 11. Proyectos de inversión en la zona de distribución de la especie en las cuatro regiones (periodo de tiempo 1997-202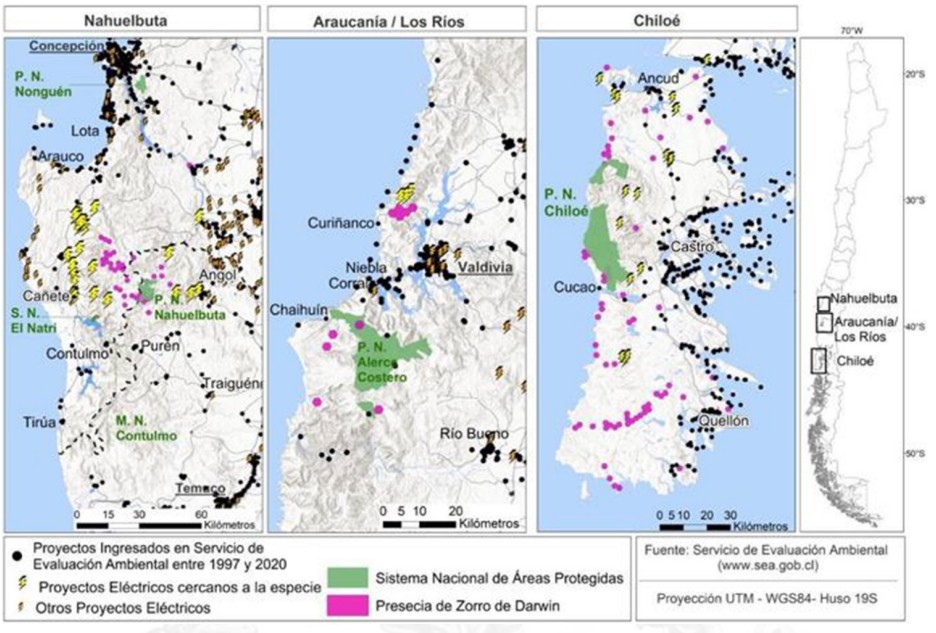 0).
0). 5.5 Avance residencial en zona rural (subdivisión predial/ cambio de uso de suelo desregulado)
El creciente aumento de demanda de terrenos con fines residenciales en ambientes naturales está provocando un cambio en la dinámica de los ecosistemas y modificando el hábitat del zorro. Dicha intervención se manifiesta en la proliferación de parcelas de agrado, de primera o segunda residencia, en sectores de laderas con presencia de bosque y matorral nativo, las que vienen acompañadas de malas prácticas en cuanto al reemplazo de la vegetación nativa por exótica, la quema de residuos y restos de podas, la tenencia irresponsable de mascotas y la construcción de caminos, entre otros aspectos.
Los efectos negativos asociados a esta amenaza se intensifican por la falta de un ordenamiento territorial con consideraciones ecológicas (p.e. planificación ecológica), así como las dificultades de fiscalización y sanción ante la vulneración de los instrumentos de planificación existentes. Lo anterior tiene como resultado un crecimiento residencial rural desregulado.
Ejemplo de esta última situación es la construcción de instalaciones con fines turísticos (cabañas y hotel) en sectores de la Región del Biobío (Valle Elicura), La Araucanía (sector colindante al Parque Nacional Nahuelbuta), Los Ríos (Los Pellines y Oncol) y Los Lagos (Quemchi en Chiloé) (Figuras 12, 13 y 14).
Región del Biobío
Figura 12. Aumento en la subdivisión predial en el Valle Elicura, 2005 izquierda y 2020 derecha.
Región de Los Lagos
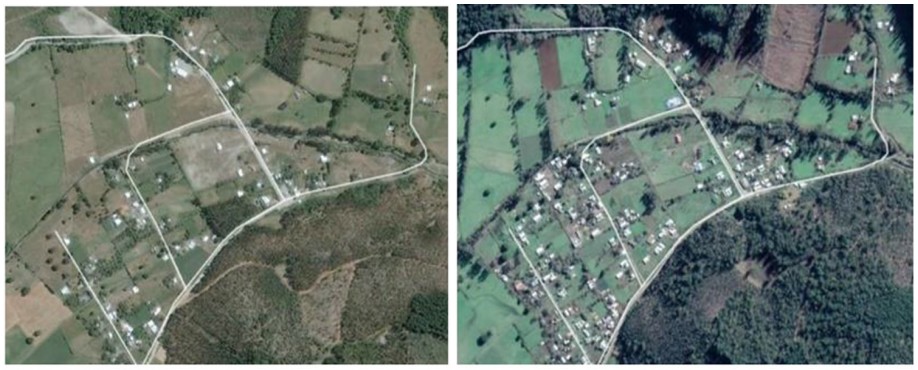
Figura 13. Aumento en la subdivisión predial en Quemchi, 2002 izquierda y 2020 derecha.
Región de Los Ríos
Figu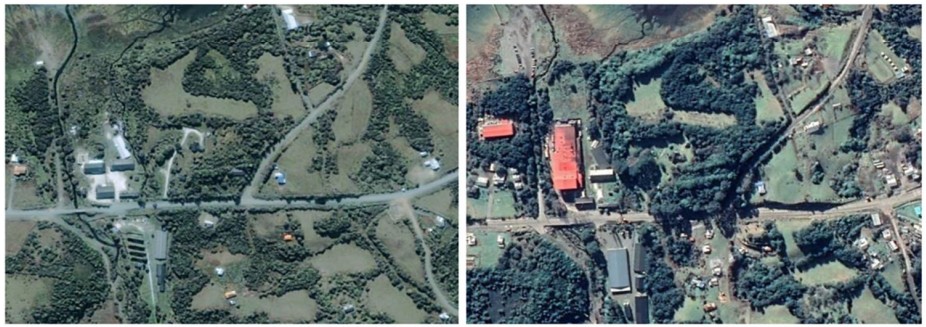 ra 14. Aumento en la subdivisión predial en Los Pellines, Región de Los Ríos 2010 izquierda y 2018 derecha.
 La Cord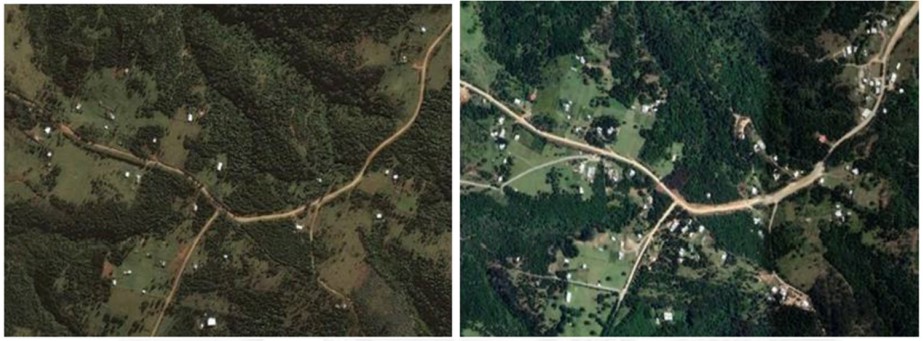 illera de la Costa de la Región de Los Ríos, involucra las comunas costeras de Mariquina, Valdivia, Corral y La Unión. Dada la belleza escénica del territorio, la amplia concentración de masas boscosas no fragmentadas y grandes ríos que desembocan en el mar, perfilan a la costa de la región como un destino apetecido para proyectos turísticos como gastronomía, ferias costumbristas, playas y pesca deportiva, entre otros, llevando a una mayor cantidad de turistas que acceden a la zona en época estival. Según bases de datos del MINVU(1), en la Cordillera de la Costa, en su vertiente occidental, se han autorizado los últimos 10 años cerca de 50 proyectos de cambio de uso del suelo, autorización de construcción en suelo agrícola, entre otros, aumentado la presión para la venta de parcelas de agrado y cambios de uso del suelo para subdivisiones prediales al borde de la legalidad de la normativa vigente.
 5.6 Especies exóticas invasoras de flora
La Convención Mundial sobre la Biodiversidad (Rio y Rio +20) señala que las especies invasoras son una de las principales amenazas a la biodiversidad del planeta, junto con la pérdida de hábitat y el cambio climático.
En el área de distribución del zorro están presentes en forma significativa las especies vegetales invasoras Ulex europaeus, conocida como espinillo o chacay, y Teline monspessulana, conocida como retamilla (figura 15). Por su parte, el espinillo es reconocido internacionalmente como una de las especies vegetales más invasoras del planeta (Lowe et al. 2004). La presencia de estas especies invasoras significa una modificación paulatina del paisaje y ecosistemas naturales donde habita el zorro, dado que invaden territorios donde se ha despejado la vegetación nativa generando una cubierta de matorral (densa y espinosa en el caso del espinillo, bastante impenetrable) que dificulta la propagación y regeneración del bosque nativo. En conjunción con otras especies exóticas arbóreas, el espinillo y la retamilla ocupan sitios con apertura de dosel impidiendo que especies nativas se reproduzcan por la alta competencia, estableciendo ensamblajes que se auto mantienen por las perturbaciones antrópicas y la recurrencia de incendios (Pauchard et al. 2014). A la vez, son especies que tienen un alto grado de combustibilidad, lo cual aumenta el riesgo de incendios forestales, especialmente en épocas estivales (Christensen 1985). Se favorece la reproducción de estas especies, por ejemplo, dado que la retamilla regenera a partir del banco de semillas posterior estos eventos (García et al. 2007), con un importante rol en la modificación de los regímenes de incendio en las zonas invadidas (Pauchard et al. 2014).
________________
(1) Oficio MINVU N° 1146, del 4 de noviembre 2020, como respuesta a Oficio MMA N° 121 del 4 de junio 2020
Figura 15. Fotografía (izq) de Ulex europaeus en flor (Fotografía: Rolando Paredes) y (der) Teline monspessulana (Foto: inter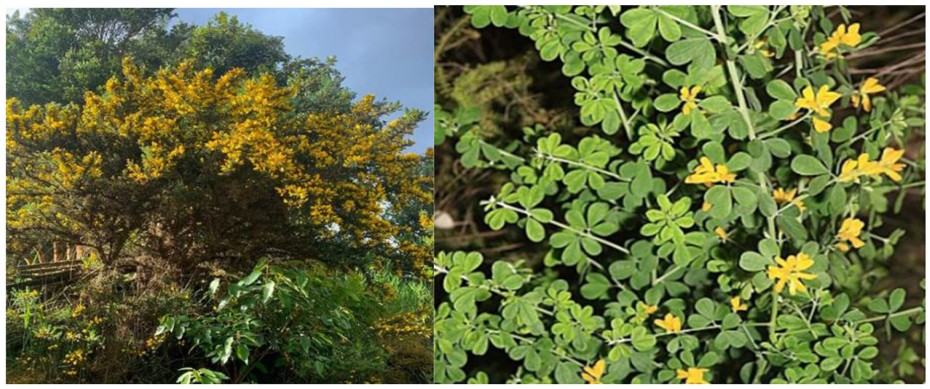 net)
net) Como se grafica en la Figura 16, ambas especies se distribuyen en las zonas norte y sur de la presencia del zorro chilote. Por su parte, el espinillo presenta una distribución más amplia en la zona sur (principalmente en la Región de Los Lagos), mientras que la retamilla ha sido identificada ampliamente en la Región del Biobío. Pauchard et al., (2008) presentan la alta incidencia en incendios de esta especie en relación con las plantaciones forestales que, identificadas en los apartados anteriores, han sido instaladas en una amplia extensión en la Cordillera de la Costa y generan un efecto amplificado para la ocurrencia y magnitud de incendios. Por su parte, según registros del Departamento de Manejo del Fuego de la Región de Los Lagos, durante el período 2015-2016 se han producido 328 focos, siendo los matorrales de U. europaeus el material combustible detonante de su origen. El favorecimiento de la ocurrencia de incendios por presencia de especies exóticas invasoras deviene en una tendencia que se ha incrementado durante los últimos cuatro años en las provincias de Chiloé y Llanquihue. El avance del fuego en este tipo de matorrales se extiende en forma superficial (propiciando alcanzar mayores alturas) y subterránea, afectando a su paso coberturas vegetales naturales, provocando alerta ciudadana por la persistente cantidad de humo y material particulado. Este suceso obliga a realizar operativos de emergencia para impedir el avance del fuego hacia centros poblados y bosques, estos últimos, los relictos de hábitat de zorro chilote.
En consecuencia, se aprecia un importante efecto sinérgico entre las amenazas que afectan al zorro y van poniendo en riesgo la integridad de la especie y su población, tales como la presencia de especies exóticas invasoras, los incendios forestales, la presencia de caminos y los efectos del cambio climático, entre otros.
Figura 16. Distribución de espinillo (Ulex europaeus) y retamilla (Teline monspessulana) en la distribución del zorro chilote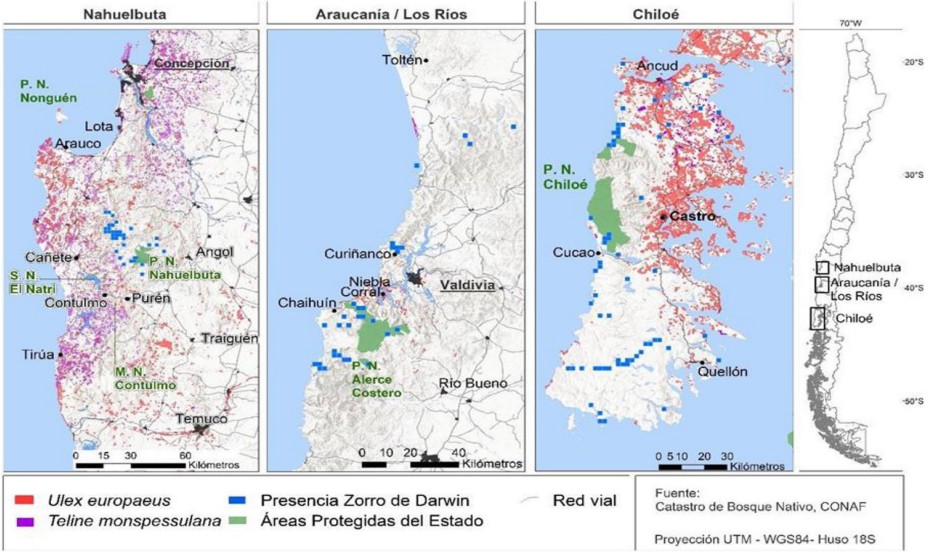 o zorro de Darwin (Fuente: Recopilación MMA FAO GEF Conservación de Especies Amenazadas en base a Castrato de Bosque Nativo de CONAF).
 5.7 Ganadería sin adecuadas consideraciones de resguardo ambiental – degradación del bosque
La actividad pecuaria emerge como una amenaza potencial a la conservación del zorro, debido principalmente, a impactos que genera sobre el nicho ecológico de la especie. En efecto, los factores de degradación más comunes en los ecosistemas forestales del país corresponden a la sobreexplotación por corta de parte de los árboles (floreo) y a la ganadería (Figura 17) (Lara et al. 2019). Esta dimensión se relaciona directamente con amenazas planteadas previamente (reducción de hábitat, sustitución de bosque nativo, presencia de perros y dispersión de especies exóticas invasoras, por ejemplo) y el análisis surge tanto del efecto sinérgico, como de la acción por su parte.
Para compatibilizar la producción ganadera con el desarrollo forestal, actualmente, en el país se desarrolla una "ganadería forestal" por sobre actividad silvopastoril, a través de la apertura desorganizada del dosel forestal para generar mayor luminosidad y aumentar la producción de forrajeras (Lara et al. 2019).
Los animales utilizados en Chile como ganado, en contextos específicos, pueden generar severos impactos relacionados con la conservación de la biodiversidad nativa. Los más de 7 millones de cabezas de ganado vacuno, cabras y ovejas que se crían en el país, demandan una cantidad de forraje que la superficie de praderas y empastadas no logran satisfacer, por lo que miles de animales ingresan al bosque nativo para alimentarse de biomasa de regeneración, afectando por pisoteo y quebrando árboles jóvenes, dificultando la renovación del bosque (Reyes 2021). Tanto en pequeñas como en grandes propiedades (incluyendo áreas protegidas), los bosques son usados por los campesinos aledaños para forraje y refugio del ganado, sin control de la densidad del ganado y su efecto en la degradación del área (Zamorano-Elgueta et al. 2014). Particularmente en algunas unidades del SNASPE y áreas protegidas privadas, los recursos no permiten mantener un adecuado control perimetral y evitar el ingreso del ganado doméstico (Lara et al. 2019).
Por un lado, existe evidencia empírica que relaciona la presencia de bovinos con una disminución en la densidad, diversidad y abundancia de presas disponibles para el zorro chilote (Vásquez 2020, Mery 2016). Por otro lado, además de potenciales impactos directos, la ganadería extensiva presenta una amenaza indirecta a la conservación de zorros, especialmente en relación con la pérdida, deterioro y fragmentación de hábitat producto del uso de especies vegetales como alimentación, compactación y erosión del suelo. Sumado a lo anterior, existe una potencial amenaza derivada de los cambios en estructura y composición del ecosistema producto de la actividad silvoagropecuaria (Vásquez 2020), disminuyendo la riqueza de especies y densidad de regeneración del sotobosque, comprometiendo la integridad de los ecosistemas en el futuro (Lara et al. 2019).
Figura 17. Vacuno registrado por cámara trampa de en las inmediaciones del Parque Nacional Nahuelbuta en 2020 (Fuente: Inicia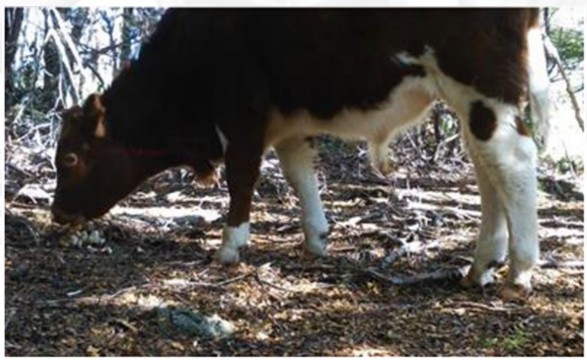 tiva Conservación de Especies Amenazadas MMA FAO GEF
 5.8 Agricultura sin adecuadas consideraciones de resguardo ambiental
Desde 1550 los cambios expresados en la disminución y degradación del bosque nativo han sido dramáticos y extensivos en las regiones de la zona centro sur del país, área en que se distribuye el zorro. En la Región del Biobío, el 25% del área antes cubierta por bosque nativo ha sido modificado por áreas agrícolas y 12% por praderas y matorrales. En la Región de La Araucanía, las áreas agrícolas cubren el 26%, y en las regiones de Los Ríos y Los Lagos el bosque nativo ha sido reemplazado principalmente por praderas y matorrales en un 25% y 27% respectivamente (Lara et al. 2012).
Lara et al. (2019) estimaron que entre los años 1999 y el 2016, a nivel país, la pérdida de bosque nativo por conversión hacia terrenos agrícolas ha alcanzado un 6%, mientras que Miranda et al. (2016) estimaron entre 1990-2010 en áreas de alta biodiversidad de Chile Central (Región Metropolitana-Región de Los Lagos), una eliminación del 20% del bosque nativo para la habilitación de terrenos agrícolas y praderas. Lo que es agravado, por la ubicación en dichas áreas del 79% de las áreas urbanas e industriales del país, el 94% de la agricultura y el 98,7% de las plantaciones forestales.
La expansión de actividades productivas a costa de la conversión del bosque nativo, como ha sido el caso de la agricultura, podría perfilar esta actividad como una actividad poco compatible con la mantención del hábitat del zorro o que podría acarrear situaciones como inundaciones. No obstante, se ha demostrado que tal relación no es lineal y depende del modo de desarrollo de la actividad. En efecto, cuando la actividad agrícola produce mayor valor por hectárea es menor la probabilidad de que los propietarios ejerzan presión y degradación sobre el bosque nativo colindante, reduciéndose la probabilidad de extracción insustentable de madera y/o uso ganadero del bosque (Reyes 2021).
5.9 Caza ilegal
Si bien el zorro chilote se encuentra protegido por la Ley de Caza, ley N° 19.473, y su reglamento de 1998, esta actividad es algo recurrente en zonas rurales con presencia de carnívoros, no por la actividad en sí, sino por represalias contra los depredadores que atacan aves de corral, principalmente gallinas. Si bien no hay registros de esta actividad contra el zorro chilote, en Chiloé son frecuentes las denuncias de ataques de zorros a gallineros hacia la ONG Chiloé-Silvestre y el SAG.
Por otro lado, hace ya varios años, la actividad de caza con fines de peletería era bastante reconocida y cotizada en Chiloé, donde se cazaban huillines, zorros, güiñas y coipos. Las personas que se dedicaban a estas actividades aún poseen las trampas tipo cepo con el cual atrapaban a estos animales. De esta manera, en el año 2013 una hembra adulta de zorro chilote fue atrapada en un cepo en el sector de Puntra, comuna de Ancud, con fractura de húmero y radio izquierdos. Este ejemplar fue atendido en la Universidad San Sebastián y el ejemplar se liberó posterior de su rehabilitación después de 1 año y medio en el Parque Tantauco.
5.10 Extracción de madera ilegal de subsistencia a pequeña escala (madera, leña y carbón)
Además de la pérdida de bosques nativos por deforestación asociada a la expansión agrícola, ganadera, forestal y urbana, la presión sobre los bosques nativos sin criterios silviculturales básicos, como la existencia de planes de manejo o la incorporación de medidas para proteger el suelo y agua, impide la regeneración arbórea (Lara et al. 2019) por lo que se consideran una causa importante de la degradación del bosque nativo (Reyes 2021).
Actualmente existe una tendencia a la disminución de la presión sobre el bosque nativo a gran escala, por la existencia de maderas exóticas e incluso frutales que ha resultado en una diversificación de fuentes de abastecimiento, especialmente entre las regiones de Valparaíso y Los Ríos (Müller-Using et al. 2021). Sin embargo, a pesar de existir disponibilidad de madera no nativa, aún existe una brecha no cubierta, de extracción para subsistencia de bosque nativo y otros tipos de abastecimiento, con fines de madera, leña y carbón. Esta extracción a pequeña escala, pero permanente, genera una presión y efectos negativos sobre los bosques –los que aún no han sido del todo cuantificados– en las distintas regiones y, en particular, en las áreas en que se distribuye el zorro.
Actualmente en Chile, la leña es insumo esencial para la generación de energía en las áreas rurales y urbano, donde el bosque nativo es principal proveedor de este recurso (Corporación Chile Ambiente 2008, Universidad de Chile 2019). Aproximadamente 77.000 hectáreas (equivalente a 10 millones de metros cúbicos de leña nativa) se utilizan anualmente como fuente de combustible en los hogares del centro-sur del país (Reyes 2021), siendo las regiones del Biobío, La Araucanía y Los Lagos, las principales consumidoras de leña, coincidiendo con el área de distribución del zorro.
El mercado para el abastecimiento de leña se caracteriza por una alta informalidad, con una extracción no sustentable que permite mantener los precios que demandan los compradores. A pesar de tal informalidad, es parte importante de las economías locales y regionales, sobre todo por su interrelación con los valores cambiantes de otros bienes suplementarios para generación de energía (Corporación Chile Ambiente 2008). Asimismo, las variaciones en los ingresos extra prediales de la economía familiar pueden afectar la presión sobre el bosque, al proveer de otras fuentes de ingreso (venta de leña, madera, carbón). De esta forma, la falta de empleo puede modificar la presión extractiva en poco tiempo (Reyes 2021). En efecto, se ha demostrado que los efectos de las presiones pueden ser mayores en las propiedades de menor tamaño, donde los propietarios recurren al bosque nativo para satisfacer necesidades de subsistencia (Zamorano-Elgueta et al. 2014).
La extracción de leña en el bosque nativo se realiza mediante diferentes formas, ya sea la corta de un árbol completo, la utilización de árboles caídos o la corta selectiva de partes de individuos (floreo). A la vez, estas actividades se realizan conjuntamente con otros usos productivos del bosque, como son la generación de carbón y la extracción de hojarasca a pequeña escala. En conjunto, la sobreexplotación se traduce en degradación, especialmente cuando la presión extractiva se mantiene durante periodos prolongados, lo que, junto con los incendios forestales, han afectado las condiciones estructurales de los bosques y su valor como proveedor de servicios ambientales (Reyes 2021).
Los efectos de la explotación de los bosques dependen también, de la configuración espacial de la matriz circundante a los fragmentos remanentes de bosque nativo, disminuyendo la conectividad entre fragmentos con mayor impacto en la cercanía a centros poblados y redes camineras (Corporación Chile Ambiente 2008).
La Región de Los Lagos posee ciertas características que facilitarían la extracción de bosque nativo, como lo son, suelos de baja productividad y en muchos casos mala conectividad. En estas condiciones, la población de la región ha crecido fuertemente en las últimas décadas, promoviendo una mayor fragmentación de la tenencia de tierras y alto porcentaje de explotaciones forestales (entre 0 y 200 hectáreas), especialmente en las provincias de Llanquihue y Chiloé (Reyes 2021). Especialmente en Chiloé, la demanda por leña de tepú (Tepualia stipularis) ha provocado la degradación de miles de hectáreas de bosques (Lara et al. 2019), a la vez que en Puerto Montt el aumento de la población ha generado la tala ilegal incluso dentro de áreas protegidas (Müller-Using et al. 2021).
5.11 Cambio Climático
Producto del cambio climático se espera un aumento de incendios en la zona, cambios de temperatura, proliferación y llegada de especies exóticas invasoras, disminución en la frecuencia, pero mayor intensidad de las lluvias. Lo anterior, en línea con los riesgos para la biodiversidad producto del cambio climático identificados en la Estrategia Climática de Largo Plazo, afectaría de manera negativa el hábitat del zorro, pudiendo inferir con ello que se mermarían sus posibilidades de alimentación, descanso y reproducción. Se requiere de más investigación para entender de manera más precisa cómo el cambio climático impacta de manera específica al zorro.
Categorización de Amenazas
Debido a que para el presente Plan es importante saber hasta qué grado el zorro está siendo afectado por las amenazas identificadas, éstas se evalúan en base a tres criterios:
- Alcance: Corresponde a la proporción del objeto de conservación biológico o cultural que es afectado o se prevé será afectado por la amenaza en un horizonte de 10 años. El alcance puede ser Bajo ( < 10%), Medio (10-30%), Alto (30-70%) y Muy Alto ( > 70%).
- Severidad o Gravedad: Corresponde a, dentro del alcance, qué porcentaje del ecosistema o de la población disminuirá, o del objeto cultural será degradado, en los próximos 10 años o 3 generaciones (lo que sea mayor). La severidad puede ser Baja ( <10%), Media (10-30%), Alta (30- 70%) y Muy Alta ( > 70%).
- Irreversibilidad o Tiempo de recuperación: Corresponde al tiempo que tardaría la recuperación del objeto de conservación si la amenaza se controlara. El tiempo de recuperación puede ser Bajo ( < 5 años), Medio (5-20 años), Alto (20-100 años) y Muy Alto ( > 100 años).
El desarrollo de esta sección se hizo de manera cualitativa con el grupo de elaboración, evaluando cada amenaza en cada territorio, bajo los 3 criterios antes mencionados, y luego se traspasó al programa Miradi para su ranking. Los resultados se muestran en la Tabla 3.
Ranking de Amenazas
Tabla 3. Ranking de amenazas identificadas para el zorro chilote respecto de cada territorio.
Fuente: Elaboración propia en base a programa Miradi.
6. ACTORES RELEVANTES
Para la etapa de implementació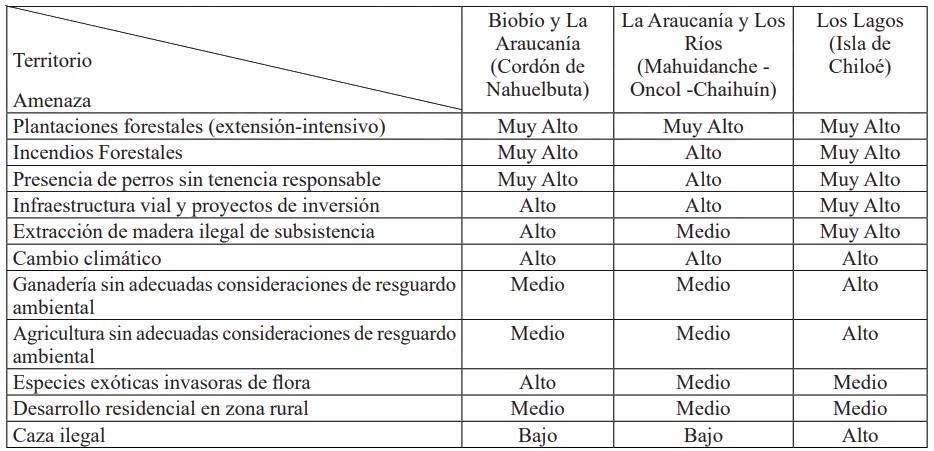 n del Plan de Recuperación, Conservación y Gestión del zorro chilote o de Darwin, es necesaria la participación de los distintos actores que tienen intereses en la conservación de la especie y el uso dado a su hábitat en que se distribuye el zorro, tanto del sector público, academia y privado.
 Los actores relevantes para la implementación de este Plan Recoge corresponden a las siguientes instituciones en las cuatro regiones que se distribuye:
7. VISIÓN
El zorro chilote o de Darwin, especie endémica de Chile, deja de estar amenazada, es conocida y v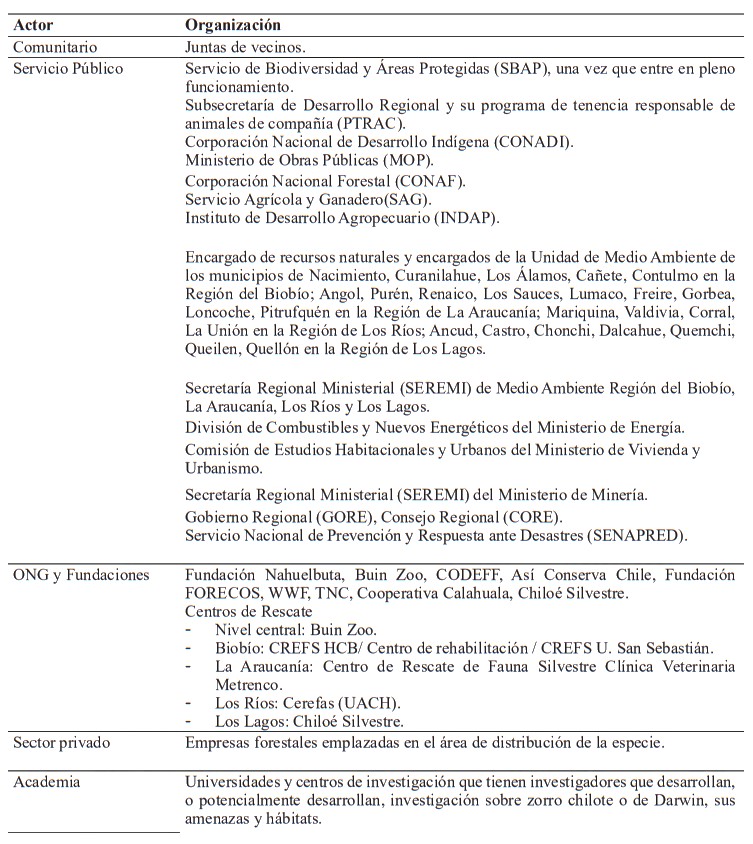 alorada por la sociedad, la que contribuye a mantener sus poblaciones viables y conectadas dentro de su distribución conocida y potencial.
 8. META
Dentro del plazo de 10 años desde la publicación del Plan, el zorro chilote o de Darwin, muestra una tendencia poblacional en aumento progresivo, una mayor distribución y mejora su categoría de amenaza (según el sistema de clasificación de especies del MMA).
9. ALCANCE TERRITORIAL
El presente Plan Recoge se circunscribirá territorialmente al área de distribución conocida y potencial de la especie que considera las regiones del Biobío, La Araucanía, Los Ríos y Los Lagos.
10.OBJETIVOS DEL PLAN
La definición de los objetivos del Plan Recoge se desarrollaron en los talleres participativos junto al Grupo de Elaboración del Plan, a partir de las acciones definidas para el control de las amenazas, el desarrollo de las líneas de acción y la obtención de la meta definida.
1. Disminuir el impacto de amenazas que afectan al zorro chilote o de Darwin y su hábitat.
2. Fortalecer la conservación del zorro chilote o de Darwin a través de la protección de sus poblaciones, la restauración de su hábitat, la investigación aplicada y la educación de la comunidad.
3. Contar con una gobernanza e institucionalidad que permite la coordinación entre regiones, órganos de la Administración del Estado y organizaciones de la sociedad civil, y cuenta con financiamiento para el desarrollo de sus acciones.
11. ESTRUCTURA DEL PLAN DE ACCIÓN
A continuación, se detallan las Líneas de Acción para cada objetivo del Plan, y las acciones asociadas a la ejecución de cada una de ellas.
Tabla 4. Líneas de acción por objetivo operativo e indicadores de seguimiento.
Tabla 5. Actividades por la línea de acción, plazos asociados, productos/resultados, responsables y colaboradores sugeridos, así como también un sistema de priorización por macrozona de la actividad.
_____________________
(2) Se considera año cronológico contabilizado desde la oficialización del Plan.
Nota: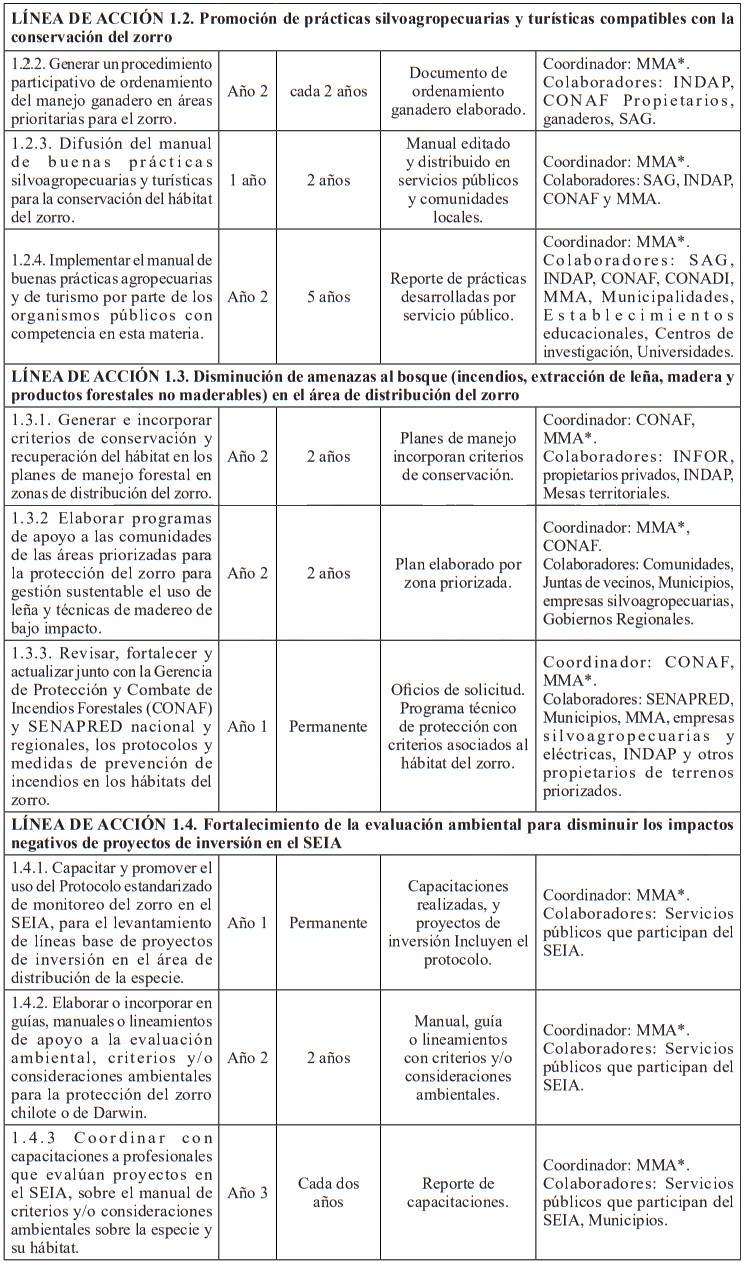
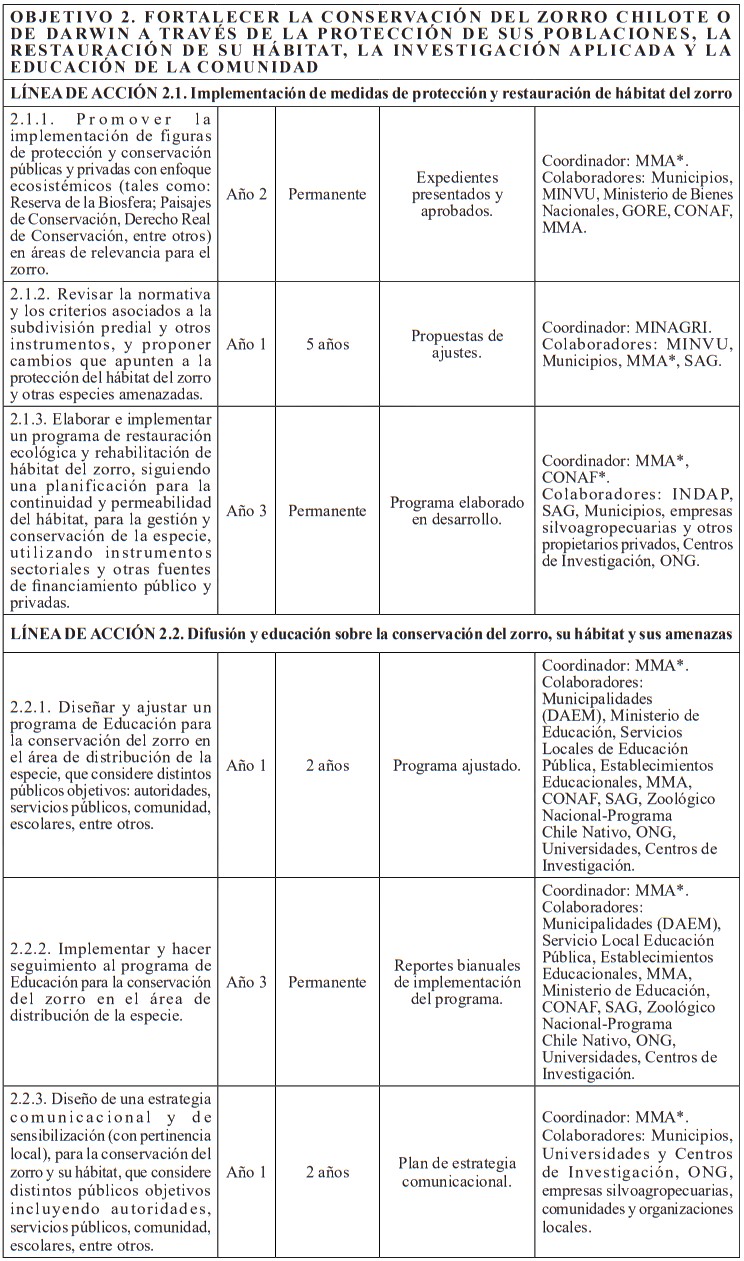 D
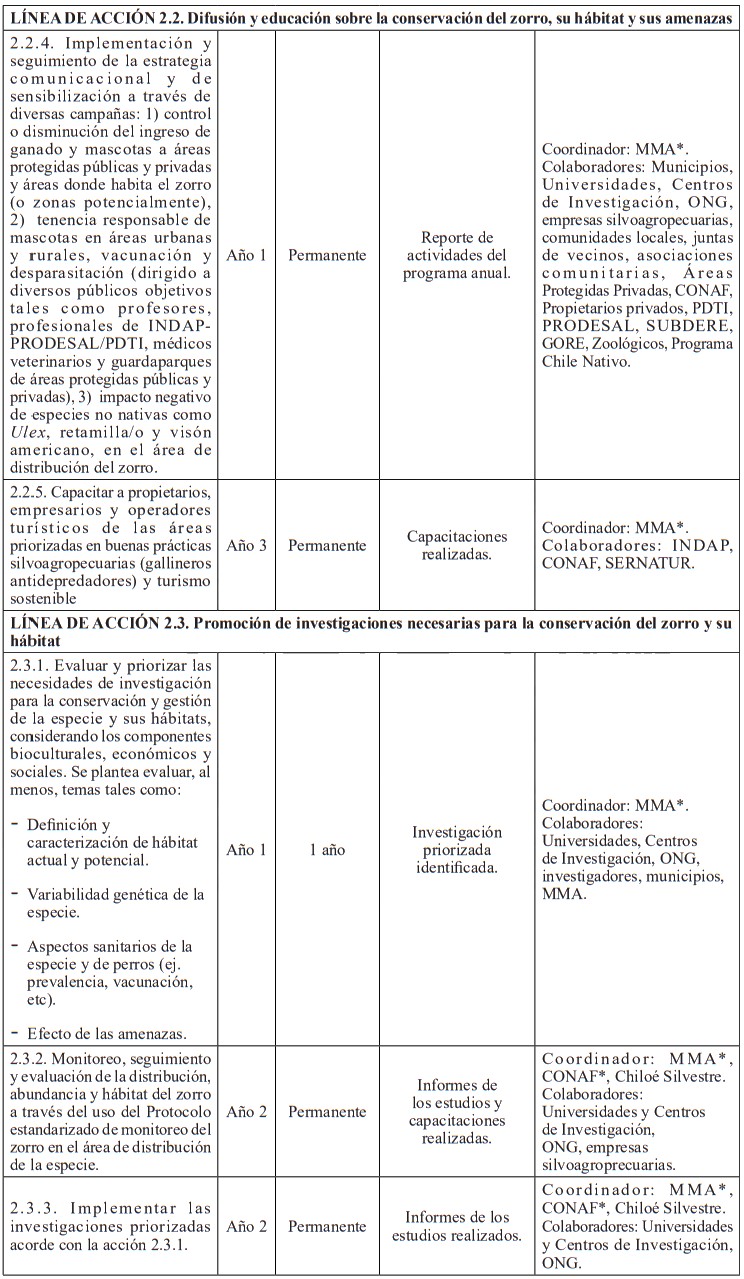 a
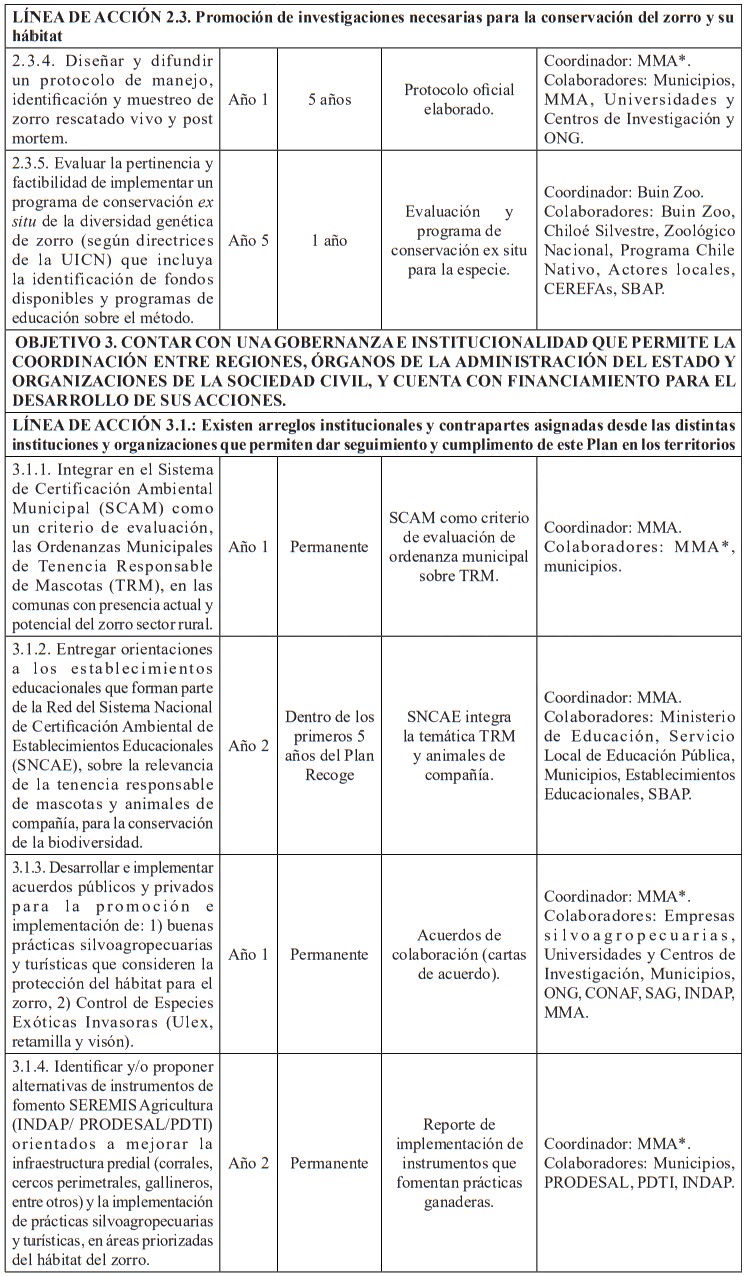 d
 a
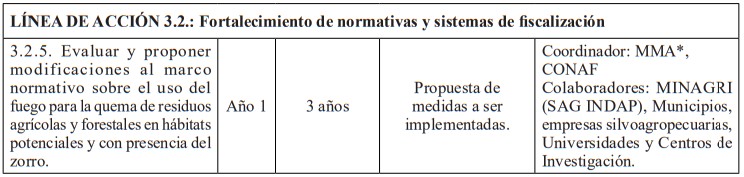 la publicación de la ley N° 21.600, que crea el Servicio de Biodiversidad y Áreas Protegidas (SBAP) y el Sistema Nacional de Áreas Protegidas, con asterisco (*) se señalan las instituciones cuyo rol o responsabilidad en la acción señalada será transferida o de responsabilidad del SBAP una vez que éste entre en pleno funcionamiento, conforme a lo establecido en el artículo 5°, letra e), de la mencionada ley N° 21.600, y sin perjuicio de lo que disponga el reglamento a que hace referencia el inciso segundo del artículo 42 del referido cuerpo legal. Asimismo, se ha considerado el Ministerio del Medio Ambiente como institución colaboradora en aquellas acciones que serán posteriormente coordinadas por el SBAP y en las que posee competencias conforme al artículo 70 de la ley N° 19.300, sobre Bases Generales del Medio Ambiente.
Dada la publicación de la ley N° 21.600, que crea el Servicio de Biodiversidad y Áreas Protegidas (SBAP) y el Sistema Nacional de Áreas Protegidas, con asterisco (*) se señalan las instituciones cuyo rol o responsabilidad en la acción señalada será transferida o de responsabilidad del SBAP una vez que éste entre en pleno funcionamiento, conforme a lo establecido en el artículo 5°, letra e), de la mencionada ley N° 21.600, y sin perjuicio de lo que disponga el reglamento a que hace referencia el inciso segundo del artículo 42 del referido cuerpo legal. Asimismo, se ha considerado el Ministerio del Medio Ambiente como institución colaboradora en aquellas acciones que serán posteriormente coordinadas por el SBAP y en las que posee competencias conforme al artículo 70 de la ley N° 19.300, sobre Bases Generales del Medio Ambiente. 12. GRUPO DE SEGUIMIENTO, PROCEDIMIENTO Y PERIODOS DE EVALUACIÓN DE LA IMPLEMENTACIÓN DEL PLAN
Grupo destinado a realizar el seguimiento de las acciones comprometidas para el éxito del Plan según lo señalado en el procedimiento y periodos de evaluación de la implementación del Plan. El grupo de seguimiento para el Plan de Recuperación, Conservación y Gestión del Zorro chilote o de Darwin estará conformado por representantes de las diferentes instituciones de las cuatro regiones con presencia de la especie:
- Ministerio del Medio Ambiente.
- Servicio Agrícola y Ganadero.
- Corporación Nacional Forestal.
La coordinación del grupo de seguimiento estará inicialmente a cargo del Ministerio del Medio Ambiente. El grupo sesionará al menos una vez por año, para verificar el cumplimiento de las acciones definidas en el Plan. Los cumplimientos de las acciones deberán ser reportadas al Ministerio por parte las instituciones o personas asignadas para cada acción.
La implementación del Plan se llevará a cabo en un horizonte de 10 años, periodo durante el cual, el grupo de seguimiento evaluará su avance cada 5 años, o según lo estime conveniente, pudiendo replantear aquellas acciones que no estén siendo efectivas para lograr alcanzar las metas propuestas en el Plan.
Se promoverá el establecimiento de instancias de coordinación pública-privada por macrozona, que permitan la integración y diseño de instancias de gobernanza a nivel local, la que podrá ser desarrollada por cada región o macrozona, según fuere pertinente, mediante las distintas mesas de trabajo público privadas que están operando a nivel territorial.
Una vez que el Servicio de Biodiversidad y Áreas Protegidas se encuentre en pleno funcionamiento y comience a ejercer sus competencias legales asociadas a los Planes de Recuperación, Conservación y Gestión de especies, conforme a lo dispuesto en el artículo 5°, letra e), de la ley N° 21.600, que crea el Servicio de Biodiversidad y Áreas Protegidas (SBAP) y el Sistema Nacional de Áreas Protegidas, el seguimiento del presente Plan será de responsabilidad del referido Servicio, sin perjuicio de lo que disponga el reglamento a que se refiere el inciso segundo del artículo 42 del referido cuerpo legal.
13. COSTO ESTIMADO PARA IMPLEMENTACIÓN
La implementación de este Plan se estima en US$4.530.240.- (cuatro millones quinientos treinta mil doscientos cuarenta) considerando un horizonte de 10 años. Se desglosa en US$ 2.417.345.-, para el cumplimiento del objetivo N° 1, US$1.930.437.-, en el caso del objetivo N° 2, y US$182.458.-, en el caso del objetivo N° 3. La siguiente tabla presenta los costos del Plan por objetivos y por línea de acción.
Para la estimación de costos se calcula el valor presente neto para cada una de las acciones definidas por el Pla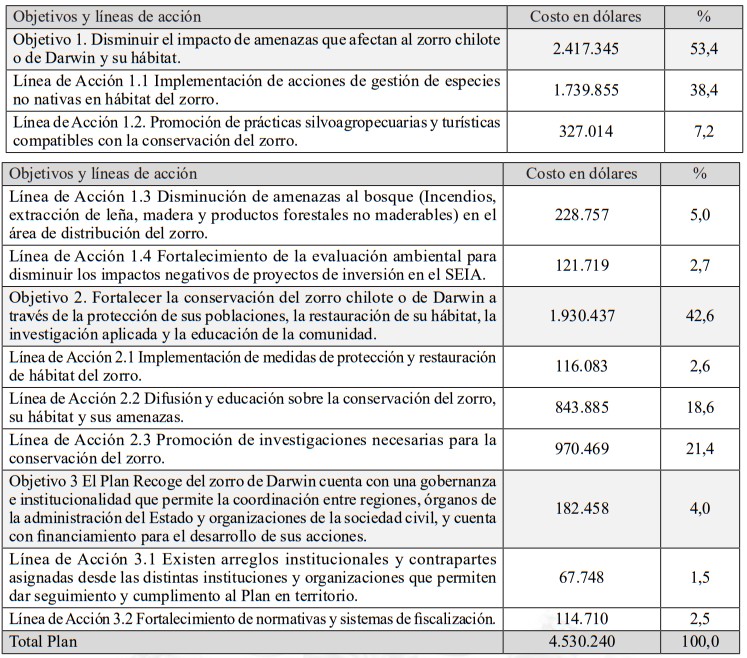 n, considerando una tasa de inversión social del 6%, definida por el Ministerio de Desarrollo Social(3), para proyectos sociales y un periodo variable dependiendo de los plazos definidos para cada acción que van desde 1 año hasta 10 años.
 Los costos presentados en este Plan corresponden a una evaluación de las acciones descritas en el mismo, pudiéndose valorar monetariamente 35 acciones, que corresponde al 85% del total (41).
_____________________
(3) Precios Sociales 2017. Ministerio de Desarrollo Social (MDS). 2017.
14. BIBLIOGRAFÍA
AGUAYO M, A PAUCHARD, G AZÓCAR & O PARRA (2009) Cambio del uso del suelo en el centro sur de Chile a fines del siglo XX. Entendiendo la dinámica espacial y temporal del paisaje. Revista Chilena de Historia Natural 82 (3): 361-374.
ALDUNATE C & L LIENLAF (2002) Voces mapuches. Mapuche Dungu. Museo de Arte Precolombino de Chile.
ARMESTO JJ, R ROZZI, P MIRANDA & C SABAG (1987) Plant/frugivore interactions in South American temperate forests. Revista Chilena de Historia Natural 60: 321-336.
BARBOSA O & P MARQUET (2002) Effects of forest fragmentation on the beetle assemblage at the relict forest of Fray Jorge, Chile. Oecologia 132: 296-306.
CASTELLETTA M, JM THIOLLAY & NS SODHI (2005) The effects of extreme forest fragmentation on the bird community of Singapore Island. Biological Conservation 121: 135-155.
BARLOW J, TA GARDNER, IS ARAUJO, TC ÁVILA-PIRES, AB BONALDO, JE COSTA, MC ESPOSITO, LV FERREIRA, J HAWES, MIM HERNANDEZ, MS HOOGMOED, RN LEITE, NF LO-MAN-HUNG, JR MALCOLM, MB MARTINS, LAM MESTRE, R MIRANDA-SANTOS, AL NUNES-GUTJAHR, WL OVERAL, ... CA PERES (2007) Quantifying the biodiversity value of tropical primary, secondary, and plantation forests. Proceedings of the National Academy of Sciences 104 (47): 18555.
CABELLO J (2019). Genética y conservación de tres especies de fauna silvestres chilenas amenazadas, distribuidas en la ecorregión de bosque valdiviano: Pudu puda, Lycalopex fulvipes y Rhinoderma darwinii. Memoria para optar al grado de Doctor. Instituto de investigación en Recursos Cinegéticos, CSIC-UCLM-JCCLM Departamento de Ciencia y Tecnología Agroforestal Universidad de Castilla-La Mancha, Ciudad Real, España.
CABELLO J & J DÁVILA (2014) Isolation and characterization of microsatellite loci in Darwin's fox (Lycalopex fulvipes) and cross-amplification in other canid species. Conservation Genetics Resources 6 (3): 759-761.
CABELLO J, F ESPERÓN, C NAPOLITANO, E HIDALGO, JA DÁVILA & J MILLÁN (2013) Molecular identification of a novel gamma herpesvirus in the endangered Darwin's fox (Lycalopex fulvipes). J Gen Virol. 94(Pt 12): 2745-2749.
CABELLO J, L ALTET, C NAPOLITANO, N SASTRE, E HIDALGO, JA DÁVILA & J MILLÁN (2013) Survey of infectious agents in the endangered Darwin's fox (Lycalopex fulvipes): high prevalence and diversity of hemotrophic mycoplasmas. Vet Microbiol. 27: 167(3-4): 448-54.
CABELLO V (2015) Medidas corporales del zorro chilote (Lycalopex fulvipes). Valdivia: Memoria de Título presentada como parte de los requisitos para optar al título de médico veterinario.
CHRISTENSEN NL (1985) Shrubland fire regimes and their evolutionary consequences. In The Ecology of Natural Disturbance and Patch Dynamics. (Eds STA Pickett, PS White) pp. 85–100. (Academic Press: New York).
CLAPP RA (2001) Tree Farming and Forest Conservation in Chile: Do Replacement Forests Leave Any Originals Behind? Society and Natural Resources 14: 341-356.
COFRÉ H & PA MARQUET (1999) Conservation status, rarity, and geographic priorities for conservation of Chilean mammals: an assessment. Biological Conservation 88: 53-68.
CORPORACIÓN CHILE AMBIENTE (2008). Estudio de Análisis del Potencial Estratégico de la leña en la Matriz Energética Chilena.
CORPORACIÓN NACIONAL FORESTAL (CONAF), Universidad Austral de Chile, Facultad de Ciencias Forestales y Recursos Naturales (UACh). 2013. Monitoreo de cambios, corrección cartográfica y actualización del catastro de recursos vegetacionales nativos de la Región de Los Lagos. Informe final. Valdivia, Chile.
CORPORACIÓN NACIONAL FORESTAL (CONAF) 2017. Análisis de la Afectación y Severidad de los Incendios Forestales ocurridos en enero y febrero de 2017 sobre los usos de suelo y los ecosistemas naturales presentes entre las regiones de Coquimbo y Los Ríos de Chile. Informe Técnico. 56 p. Santiago, Chile.
DE ANGELO C, A PAVIOLO & M DI BITETTI (2011) Differential impact of landscape transformation on pumas (Puma concolor) and jaguars (Panthera onca) in the Upper Paraná Atlantic Forest. Diversity and Distributions 17: 422-436.
D'ELÍA G, A ORTLOFF, P SÁNCHEZ, B GUIÑEZ & V VARAS (2013) A new geographic record of the endangered Darwin's fox Lycalopex fulvipes (Carnivora: Canidae): filling the distributional gap. Revista Chilena de Historia Natural 86(4): 485-488. https://dx.doi.org/10.4067/S0716-078X2013000400010
DI CATALDO S, E HIDALGO-HERMOSO, I SACRISTÁN, A CEVIDANES, C NAPOLITANO, C HERNÁNDEZ, F ESPERÓN, D MOREIRA-ARCE, J CABELLO, A MÜLLER & J MILLÁN (2020) Hemoplasmas Are Endemic and Cause Asymptomatic Infection in the Endangered Darwin's Fox (Lycalopex fulvipes). Appl Environ Microbiol 86: 1-13.
ECHEVERRÍA C, D COOMES, J SALAS, JM REY-BENAYAS, A LARA & A NEWTON (2006) Rapid deforestation and fragmentation of Chilean temperate forests. Biological Conservation 130: 481–494.
ECHEVERRÍA C, D COOMES, A NEWTON, JM REY-BENAYAS & A LARA (2007) Impacts of forest fragmentation on species composition and forest structure in the temperate landscape in southern Chile. Global Ecology and Biogeography 16: 426–439.
ECHEVERRÍA C, A NEWTON, L NAHUELHUAL, D COOMES & JM REY- BENAYAS (2012) How landscapes change: Integration of spatial patterns and human processes in temperate landscapes of southern Chile. Applied Geography 32: 822-831.
ELGUETA E, J VALENZUELA & J RAU (2007) New insights into the prey spectrum of Darwin's fox Pseudalopex fulvipes Martin, 1837) on Chiloé Island, Chile. Mammalian Biology 3: 179-185.
ESCOBAR L, H QIAO, J CABELLO & T PETERSON (2018) Ecological niche modeling reexamined: Darwin's fox. Ecology and Evolution 1-14.
FAO (FOOD AND AGRICULTURE ORGANIZATION OF THE UNITED NATIONS) (2010) Global Forest Resources Assesment 2010, Main Report.
FARÍAS A, MA SEPÚLVEDA, EA SILVA-RODRÍGUEZ, A EGUREN, D GONZÁLEZ, NI JORDÁN, E OVANDO, P STOWHAS & GL SVENSSON (2014) A new population of Darwin's Fox (Lycalopex fulvipes) in the Valdivian Coastal Range. Revista Chilena de Historia Natural 87: 1-3.
GARCÍA R, A PAUCHARD & E PEÑA (2007) Banco de semillas, regeneración y crecimiento de Teline monspessulana (L.) K. Koch Después de un incendio forestal. Gayana Botánica 64(2): 201-210.
GOTELLI D, J MARINO, C SILLERO-ZUBIRI & S FUNK (2004) The effect of the last glacial age on speciation and population genetic structure of the endanger Ethiopian wolf (Canis simensis). Molecular Ecology 13: 2275-2286.
GREER JK (1965) Mammlas of Malleco Province, Chile. Publs Mus., Mich. State univ., Biol. Ser., 3, 49-152.
HECHENLEITNER VP, M GARDNER, P THOMAS, C ECHEVERRÍA, B ESCOBAR, P BROWNLESS & C MARTÍNEZ (2005) Plantas Amenazadas del Centro-Sur de Chile: Distribución, Conservación y Propagación. Primera Edición. Universidad Austral de Chile y Real Jardín Botánico de Edimburgo. 188 pp.
HEDRICK P & T KIM (2000) Genetics of complex polymorphisms: Parasites and maintenance of the major histocompatibility complex variation. In: R. Singh & C. Krimbas, eds. Evolutionary Genetics: from Molecules to Morphology. Cambridge: University Press, Cambridge. 204-234.
HEDRICK P (2001) Conservation genetics: where are we now? Trends in Ecology and Evolution 16: 629-636.
HEILMAYR R, C ECHEVERRÍA, R FUENTES & EF LAMBIN (2016) A plantation-dominated forest transition in Chile. Applied Geography 75: 71-82.
HIDALGO-HERMOSO E, J CABELLO, C VEGA, H KROEGER-GÓMEZ, D MOREIRA-ARCE, C NAPOLITANO, C NAVARRO, I SACRISTÁN, A CEVIDANES, S DI CATALDO, EJ DUBOVI, C MATHIEU-BENSON & J MILLÁN (2020) An Eight-Year Survey for Canine Distemper Virus Indicates Lack of Exposure in the Endangered Darwin's Fox (Lycalopex fulvipes). Journal of Wildlife Diseases 56(2): 482–485.
HOLT TV, M CARLOS, WB MICHAEL, MP KENNETH, M SANDOR & F THOMAS (2012) "Influence of Landscape Change on Nearshore Fisheries in Southern Chile." Global Change Biology 18 (7): 2147–60.
HUGHES A (1991) MHC polymorphism and the design of captive breeding programs. Conservation Biology 5: 249-251.
IRIARTE A (2008) Mamíferos de Chile. Barcelona: Lynx Edicions.
JACKSON RB, EG JOBBÁGY, R AVISSAR, SB ROY, DJ BARRETT, CW COOK, KA FARLEY, DC LE MAITRE, BA MCCARL & BC MURRAY (2005) Trading water for carbon with biological carbon sequestration. Science 310(5756): 1944–1947.
JAKSIC F, J JIMÉNEZ, R MEDEL & PR MARQUET (1990) Habitat and diet of the Darwin's fox (Pseudalopex fulvipes) on the Chilean mainland. Journal of Mammalogy 71: 246-248.
JIMÉNEZ J & E MCMAHON (2004) Darwin's fox Pseudalopex fulvipes (Martin, 1837). In: C. Sillero-Zubiri, M. Hoffmann & D. E. Macdonald, eds. Canids: foxes, wolves, jackals and dogs. Status survey and conservation action plan. Oxford: Glands and Oxford: IUCN/SSC Canid Specialist group. 50-55.
JIMÉNEZ J, P MARQUET, R MEDEL & F JAKSCI (1991) Comparative ecology of Darwin's fox (Pseudalopex fulvipes) in mainland and island settings of southern Chile. Revista Chilena de Historia Natural 63: 177-186.
JIMÉNEZ JE, M LUCHERINI & AJ NOVARO (2008) Pseudalopex fulvipes. In: IUCN 2012. IUCN Red List of Threatened Species.
JIMÉNEZ J (2000) Viability of the endangered Darwin's fox (Pseudalopex fulvipes): assessing ecological factors in the last mainland population and its ecology on the island population., Chicago: Informe de avance (mayo 1999-agosto 2000) Lincoln Park Zoo Neotropical fund.
JIMÉNEZ J (2005) El enigmático zorro de Darwin. en: Smith-Ramírez, C., Armesto, JJ., & Valdovinos, C., eds. Historia, Biodiversidad y ecología de los bosques costeros de Chile. Santiago: Editorial Universitaria.
JIMÉNEZ J (2007) Ecology of a coastal population of the critically endangered Darwin's Fox (Pseudalopex fulvipes) on Chiloé Island, southern Chile. Journal of Zoology 271: 63-77.
LACHISH S, M JONES & J MCCALLUM (2007) The impact of disease on the survival and population growth rate of the Tasmanian devil. Journal of Animal Ecology 76, 926?936.
LARA A, ME SOLARI, MDR PRIETO & MP PEÑA (2012) Reconstrucción de la cobertura de la vegetación y uso del suelo hacia 1550 y sus cambios a 2007 en la ecorregión de los bosques valdivianos lluviosos de Chile (35º - 43º 30' S). Bosque (Valdivia) 33(1): 13-23.
LARA A, R URRUTIA-JALABERT, R REYES, ME GONZALEZ, A MIRANDA, A ALTAMIRANO & C ZAMORANO-ELGUETA (2019) Bosque Nativo, in: Informe País: Estado Del Medio Ambiente En Chile 2018. Centro de Análisis de Políticas Públicas, Instituto de Asuntos Públicas, Universidad de Chile, Santiago, Chile, pp. 171–215.
LITTLE C, A LARA, J MCPHEE & R URRUTIA (2009) Revealing the impact of forest exotic plantations on water yield in large scale watersheds in South-Central Chile. Journal of Hydrology 374: 162-170.
LOWE S, M BROWNE, S BOUDJELAS & M DE POORTER (2004) 100 de las Especies Exóticas Invasoras más dañinas del mundo. Una selección del Global Invasive Species Database. Grupo Especialista de Especies Invasoras (GEEI), Auckland, Nueva Zelanda.
MEDEL R, JE JIMÉNEZ, FM JAKSIC, JL YÁÑEZ & JJ ARMESTO (1990). Discovery of a continental population of the rare Darwin's fox, Dusicyon fulvipes (Martin 1837) in Chile. Biological Conservation 51: 71-77.
MERY M (2016) Identificación de las áreas de superposición espacial de Lycalopex fulvipes (zorro azul o de Darwin) con animales domésticos en la Cordillera de Nahuelbuta. Tesis para optar al grado de Médico Veterinario. Escuela de Medicina Veterinaria, Universidad Mayor.
MIRANDA A, A ALTAMIRANO, L CAYUELA, A LARA & M GONZÁLEZ (2017) Native forest loss in the Chilean biodiversity hotspot: revealing the evidence. Regional Environmental Change 17: 285–297.
MITTERMEIER RA, WR TURNER, FW LARSEN, TM BROOKS & C GASCON (2011). Global biodiversity conservation: the critical role of hotspots. F.E. Zachos, J.C. Habel (Eds.), Biodiversity Hotspots, Springer Publishers, London, pp. 3-22.
MOREIRA-ARCE D, P VERGARA, S BOUTIN, J SIMONETTI, C BRICEÑO & G ACOSTA-JAMETTE (2015) Native Forest replacement by exotic plantations triggers changes in prey selection of mesocarnivores. Biological Conservation 192: 258-267.
MÜLLER-USING S, C BAHAMÓNDEZ, R SAGARDÍA PARGA, G VERGARA ASENJO & R REYES GALLARDO (2021) Bosques nativos de Chile: estado, presiones e importancia en una época de cambios. Instituto Forestal, Chile. 83 p.
O'BRIEN S & J EVERMANN (1988) Interactive influence of infectious disease and genetic diversity in natural population. Trends in Ecology and Evolution 3: 254-259.
OTAVO S & C ECHEVERRÍA (2017) Fragmentación progresiva y pérdida de hábitat de bosques naturales en uno de los hotspot mundiales de biodiversidad. Revista Mexicana de Biodiversidad 88: 924-935.
OYARZÚN C & L PEÑA (1995) Soil erosion and overland flow in forested areas with pine plantations at coastal mountain range, central Chile. Hydrological Processes 9: 111-118.
PATERSON S, K WILSON & J PEMBERTON (1998) Major histocompatibility complex variation associated with juvenile survival and parasite resistance in a large unmanaged ungulate population. Proceedings of the National Academy of Sciences 95: 3714-3719.
PAUCHARD A, R GARCÍA, E PEÑA, R BUSTAMANTE ARAYA, C GONZÁLEZ & L CAVIERES (2008). Positive feedbacks between plant invasions and fire regimes: Teline monspessulana (L.) K. Koch (Fabaceae) in central Chile. Biological Invasions 10 (4): 547-553.
PAUCHARD A, R GARCÍA, B LANGDON, M NUÑEZ (2014) Invasiones de plantas en ecosistemas forestales: bosques y praderas invadidas. In: Donoso C, Gonzalez M, Lara A (eds) Ecología Forestal: Bases para el Manejo Sustentable y Conservación de los Bosques Nativos de Chile. Ediciones Universidad Austral de Chile, Valdivia, pp 673–691.
PLATH O (1983) Geografía del mito y la leyenda chilena. Nascimento. Santiago de Chile, Chile.
PLOSHNITSA A, ME GOLTSMAN, DW MACDONALD, LJ KENNEDY & S SOMMER (2012) Impact of historical founder effects and a recent bottleneck on MHC variability in Commander Arctic foxes (Vulpes lagopus). Ecology and Evolution 2(1): 165-180.
REYES R (2021) Promotores socioeconómicos de la pérdida y degradación del bosque nativo en Chile - Informe técnico. Santiago de Chile, FAO y MINAGRI.
REYES B, A VÁSQUEZ, A GALLARDO & A BOGUE (2010). Informe final consultoría: Diseño de una propuesta de un plan de conservación para el zorro chilote (Pseudalopex fulvipes), Cordillera de Nahuelbuta, Región del Biobío. Fundación Ética en Los Bosques.
RICHARDSON DM (1998) Forestry trees as invasive aliens. Conservation Biology. 12: 18–26.
SILVA-RODRÍGUEZ E, A FARIAS, D MOREIRA-ARCE, J CABELLO, E HIDALGO-HERMOSO, M LUCHERINI & J JIMÉNEZ (2016) Lycalopex fulvipes (errata version published in 2016). The IUCN Red List of Threatened Species 2016.
SILVA-RODRÍGUEZ EA, E OVANDO, D GONZÁLEZ, B ZAMBRANO, MA SEPÚLVEDA, GL SVENSSON, R CÁRDENAS, P CONTRERAS & A FARÍAS (2018) Large-scale assessment of the presence of Darwin's fox across its newly discovered range. Mammalian Biology 92: 45-53.
SMITH-RAMÍREZ C (2004) The Chilean coastal range: a vanishing center of biodiversity and endemism in South American temperate rainforests. Biodiversity & Conservation, 13.373-393.
STEPHENS SS & MR WAGNER (2007) Forest plantations and biodiversity: A fresh perspective. Journal of Forestry 105: 307-313.
STRATFORD JA & PC STOUFFER (2015) Forest fragmentation alters microhabitat availability for Neotropical terrestrial insectivorous birds. Biological Conservation 188: 109-115.
TIMM S, L MUNSON, BA SUMMERS, KA TERIO, EJ DUBOVI, CHE RUPPRECHT, S KAPIL & DK GARCELON (2009) A suspected canine distemper epidemic as the cause of a catastrophic decline in Santa Catalina Island Foxes (Urocyon littoralis catalinae). Journal of Wildlife Disease 45(2): 333-343.
VÁSQUEZ V (2019) Variación espacio-temporal en la presencia de animales domésticos en dos áreas protegidas costeras de la Región de los Ríos. Trabajo de Titulación presentado como parte de los requisitos para optar al Título de Ingeniera en Conservación de Recursos Naturales. Universidad Austral de Chile.
VILÀ C, J LEONARD, A IRIARTE, S O'BRIEN, W JOHNSON & R WAYNE (2004) Detecting the vanishing populations of the highly endangered Darwins fox, Pseudalopex fulvipes. Animal Conservation 7: 147-153.
WAYNE R, E GEFFEN & C VILÀ (2004) Population genetics: population and conservation genetics of canids. In: D. &. S. C. Macdonald, ed. The biology and conservation of wild canids. Oxford: Oxford University Press. 55-84.
WOLODARSKY-FRANKE A & S DÍAZ (2011) Cordillera de Nahuelbuta. Reserva mundial de biodiversidad. WWF, Valdivia.
YAHNKE C, WE JOHNSON, E GEFFEN, D SMITH, F HERTEL, MS ROY, CF BONACIC, TK FULLER, B VAN VALKENBURGH & K WAYNE (1996) Darwin's fox: a distinct endangered species in a vanishing habitat. Conservation Biology 10: 366-375.
ZAMORANO-ELGUETA C, L CAYUELA, JM REY-BENAYAS, PJ DONOSO, D GENELETTI & RJ HOBBS (2014) The differential influences of human-induced disturbances on tree regeneration community: a landscape approach. Ecosphere 5(7): 90.
Anexos:
1) Protocolo de monitoreo para zorro de Darwin
https://gefespeciesamenazadas.mma.gob.cl/wp-content/uploads/2022/10/5.-PROTOCOLO-MONITOREO-ZORRO-DE-DARWIN-06-OCTUBRE-2022.pdf
2) Manual buenas prácticas para la conservación del zorro de Darwin
https://gefespeciesamenazadas.mma.gob.cl/wp-content/uploads/2022/10/1.-MANUAL-DE-BUENAS-PRACTICAS-ZORRO-DE-DARWIN-06-OCTUBRE-2022.pdf
Anótese, tómese razón y publíquese.- GABRIEL BORIC FONT, Presidente de la República.- María Heloísa Rojas Corradi, Ministra del Medio Ambiente.- Esteban Valenzuela van Treek, Ministro de Agricultura.
Lo que transcribo para Ud. para los fines que estime pertinente.- Maximiliano Proaño U., Subsecretario del Medio Ambiente.
Contraloría General de la República
División Jurídica
Cursa con alcances el decreto N° 41, de 2024, del Ministerio del Medio Ambiente
N° E182253/2025.- Santiago, 27 de octubre de 2025.
Esta Contraloría General ha dado curso al decreto singularizado en el epígrafe, que Aprueba Plan de Recuperación, Conservación y Gestión del Zorro Chilote o de Darwin (Lycalopex Fulvipes), no obstante cabe hacer presente que, al tenor de lo previsto en los preceptos legales que regulan la materia, el referido plan busca fortalecer la recuperación, conservación y gestión de esa especie, contemplando las políticas a seguir en dicho ámbito, y su contenido no reviste carácter normativo, de manera que los objetivos y acciones que en él se fijan, deberán sujetarse en su concreción a las disposiciones del ordenamiento jurídico vigente. Por ende, en la implementación del referido plan, las instituciones responsables y colaboradoras consideradas en el mismo, no podrán exceder el límite de las atribuciones que la ley les asigna en relación con las acciones que les corresponde ejecutar.
A continuación, respecto de aquellas acciones que señalan como indicadores de cumplimiento la aprobación de actos administrativos o normativos que corresponde emitir a entidades distintas de las responsables, cabe precisar que la obligación se entenderá satisfecha cuando se inicie o persevere en la tramitación del respectivo proyecto, según sea el caso.
A su vez, las menciones que se hagan a la Corporación Nacional Forestal deberán entenderse efectuadas al Servicio de Biodiversidad y Áreas Protegidas o al Servicio Nacional Forestal, según corresponda a la competencia de que se trate, una vez que entren en pleno funcionamiento tales organismos que la reemplazan, acorde con las leyes N°s. 21.600 y 21.744, respectivamente.
Con los alcances que anteceden, se ha tomado razón del instrumento del rubro.
Saluda atentamente a Ud., Carolina Requena Duschner, Contralora General de la República (S).
A la Señora
Ministra del Medio Ambiente
Presente.